




Глава VI. Взаимодействие специфической и неспецифической афферентации при формировании дифференцировочного торможения
В школе И. П. Павлова было сделано предположение о том, что дифференцировочное и угасательное торможение формируется с участием как корковых, так и субкортикальных структур мозга. И. П. Павлов полагал, что дифференцировочное торможение "развивается в соответственном анализаторе, где происходит анализ раздражителей" (И. П. Павлов, 1949, т. III, стр. 149). В то же время И. П. Павлов отмечал, что торможение не локализуется лишь в анализаторе, воспринимающем дифференцировочный сигнал, а распространяется на рабочие аппараты эффекторного отдела дуги условного рефлекса. Он писал (1932): "Надо представить, что с пунктов искусственных условных раздражителей развивается сильное торможение на весь подкорковый пищевой центр с его обоими главными компонентами - секреторным и двигательным, а также и на соответствующий отдел коркового двигательного анализатора" (И. П. Павлов, 1949, т. III, стр. 419).
В дальнейшем ученики и последователи И. П. Павлова развивали разные стороны этого цельного представления о торможении как процессе, охватывающем систему структур мозга. П. С. Купалов и А. М. Ушакова (1931), А. А. Травина (1954), П. С. Купалов (1960) считали, что внутреннее торможение может возникать как в одном, так и в двух корковых концах взаимодействующих анализаторов. Б. П. Бабкин (1904), Г. П. Зеленый (1907), Л. Г. Воронин (1952), А. И. Ройтбак (1960), У. Г. Гасанов (1962) и другие придерживаются точки зрения, что торможение локализуется лишь в анализаторе, к которому адресуется дифференцируемое раздражение. Э. А. Асратян (1955, 1959) полагает, что торможение формируется где-то на путях между корковым концом условного анализатора и корковым представительством пищевого центра. Группа исследователей (И. Я. Перельцвейг, 1907; Н. А. Кашерининова, 1908; П. К. Анохин, 1932, 1958а; Н. А. Рокотова, 1953; И. И. Короткий и М. М. Суслова, 1955; Б. И. Ходоров, 1955; Г. В. Скипин, 1956; Р. Г. Зевальд, 1958; М. А. Панкратов, 1960) отрицает представление об анализаторной локализации торможения и отстаивает мысль о локализации торможения в эфферентной части дуги условного рефлекса. Вместе с тем, П. К. Анохин (1958а) полагает, что формирование дифференцировочного или угасательного торможения на базе пищевого рефлекса протекает по принципу одновременного создания биологически отрицательной реакции "трудного конфликтного состояния". Формирование внутреннего торможения на базе оборонительной реакции П. К. Анохин рассматривает как прямо противоположное явление: "Устранение выработанной отрицательной реакции животного или его "трудного состояния" через возбуждение положительных реакций не имеет конфликтного характера и потому маловероятно, чтобы оно осуществлялось с помощью одних и тех же механизмов, а именно с помощью активного внутреннего торможения" (П. К. Анохин, 1958а, стр. 156). И далее: "Переход от биологически отрицательной реакции к биологически положительной происходит без активного торможения в том виде, как мы его знаем на примере общеизвестного внутреннего торможения, и, следовательно, конкретный физиологический механизм этого перехода должен стать очередной задачей физиологических исследований" (там же, стр. 158).
По-существу, все электрофизиологические эксперименты подтвердили суждение И. П. Павлова, высказанное им на одной из сред, что дифференцировочное торможение есть смешанное безусловно-условное. Однако механизм и локализация тормозного процесса остаются до настоящего времени предметом разногласий. До настоящего времени нет еще единого мнения даже о том, какое электрографическое выражение имеет дифференцировочное торможение, формирующееся на базе разных условных рефлексов, зависит ли это выражение и в какой степени от характеристики сигнальной стимуляции. В связи с этим нет и общепризнанных суждений о том, как оценить ту или иную электрическую реакцию, которая сопровождает дифференцировочное торможение. Следуя представлениям о том, что медленные волны отражают собой тормозное состояние мозгового субстрата (Jasper, 1941; Gibbs, Gibbs, 1950, 1952, и др.), исследователи искали и находили медленные колебания потенциала в момент осуществления дифференцировочного торможения, вырабатываемого на базе и пищевых (Н. Н. Любимов, 1960) и двигательных (Jus, Jus, 1956, 1959а, b; М. Я. Рабинович, 1958; Roy и сотр., 1961, и др.) рефлексов, однако эти данные не нашли полного подтверждения в самые последние годы. В эти годы появились наблюдения, свидетельствующие о том, что в момент действия отрицательного, дифференцировочного стимула, вопреки ожидаемым медленным волнам, появляется, как правило эффект десинхронизации, сходный с тем, который сопровождает действие условного оборонительного сигнала (Ю. Г. Кратин, 1960; Р. С. Мнухина, 1963, и др.). Как понять наблюдаемое явление? Очевидно, ответ на этот вопрос следует искать в тщательном изучении электрических процессов на разных уровнях анализаторов, а также в тех структурах, которые к ним не причисляются. Нам думается, что этому поможет и изучение динамики параметров вызванных ответов, сопровождающих формирование дифференцировочного торможения. Такое исследование необходимо вести на базе разных условных рефлексов, с использованием разных сигнальных раздражений и на разных животных.
Наше исследование в этой области ограничилось изучением динамики электрических процессов у собак при формировании дифференцировочного торможения, вырабатываемого на непрерывные и ритмические звуковые раздражения разной интенсивности.
Изучение электрической активности мозговых структур при формировании дифференцировочного торможения показало значительные различия в сдвигах ЭЭГ на разных этапах образования дифференцировки. Кроме того, электрографическое выражение этого вида внутреннего торможения в значительной мере зависело от интенсивности стимула, на который происходила выработка тормозной реакции.
Начнем описание с изменений ЭГ, сопровождающих формирование дифференцировочного торможения на подпороговые и пороговые (в смысле вызова электрографической реакции) звуковые раздражения. На рис. 47-48 представлены записи ЭГ корковых и бульбарных структур собаки № 4, сделанные в процессе выработки дифференцировочного торможения на тон 100 гц 59 дб. Видно, что действие этого сигнала в начале выработки на него дифференцировочного торможения (см. рис. 47, а) сопровождается двигательной реакцией и вызывает генерализованное снижение электрической активности в структурах продолговатого мозга и эффект десинхронизации на уровне большинства корковых зон. В сенсомоторной области коры регистрируется резкая экзальтация (в 2-3 раза) электрических колебаний, которая в конце действия отрицательного сигнала еще больше усиливается; при этом усиливаются и осцилляции в кохлеарных ядрах и коре эктосильвиевой извилины. На следующем этапе начинают регистрироваться изменения ЭГ, приуроченные к системе слухового и кожно-двигательного анализаторов. На рис. 47, б представлено 28-е применение дифференцировочного стимула, которое сопровождается двигательной реакцией и вызывает изменения электрических потенциалов, сходные с наблюдаемыми при осуществлении условного рефлекса в первый период концентрации, а именно избирательный рост электрической активности во взаимодействующих анализаторах, отчетливо выраженный в первичных переключательных реле слухового анализатора (кохлеарных ядрах) и корковом конце кожно-двигательного анализатора (сенсомоторной зоне коры). В ядрах нежного и клиновидного канатиков и нижнем центральном ядре ретикулярной формации наступает снижение электрических колебаний. В корковых структурах регистрируется усиление процессов, выражающееся либо в возрастании только частоты колебаний (слуховая область коры), либо в возрастании их ритма и амплитуд (зрительная область коры). По мере дальнейшего неподкрепления этого сигнала сначала исчезает моторная реакция, а затем и ее электрографические признаки. На рис. 48 видно, что лишь в первый момент действия дифференцировочного стимула (43-е применение) наступает некоторое возрастание электрических осцилляций, заметное в сенсомоторных зонах коры и бульбарных структурах мозга, а затем происходит восстановление исходного уровня процессов, и к 2-3 сек действия звукового сигнала активность несколько снижается. В конечном счете, дифференцировочный раздражитель перестает вызывать изменения электрических потенциалов как в структурах коры головного мозга, так и в ядрах ствола.
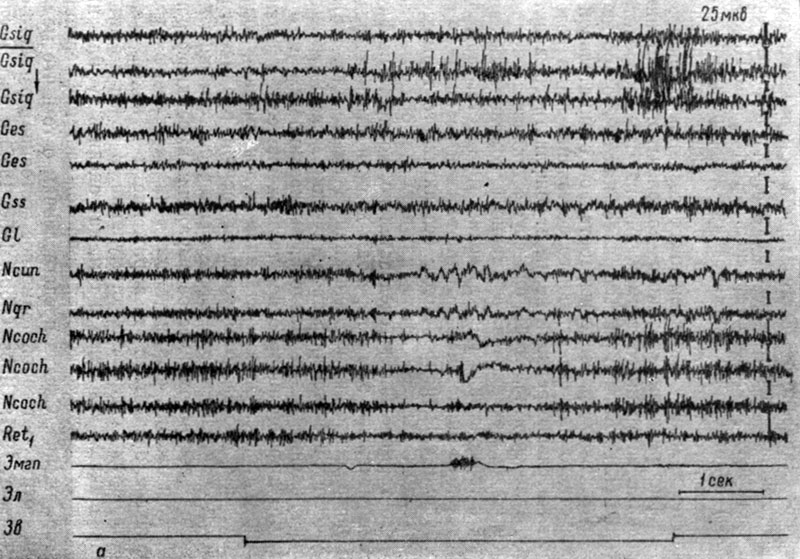
Рис. 47. Изменения ЭГ коры большого мозга и образований продолговатого мозга собаки № 4 в процессе образования дифференцировки на тон 100 гц 59 дб. а - 23-е (опыт № 68 от 27/IV 1959); б - 28-е применение дифференцировочного раздражения (опыт № 73 от 8/V 1959 г. - по Т. С. Наумовой, 1962б)
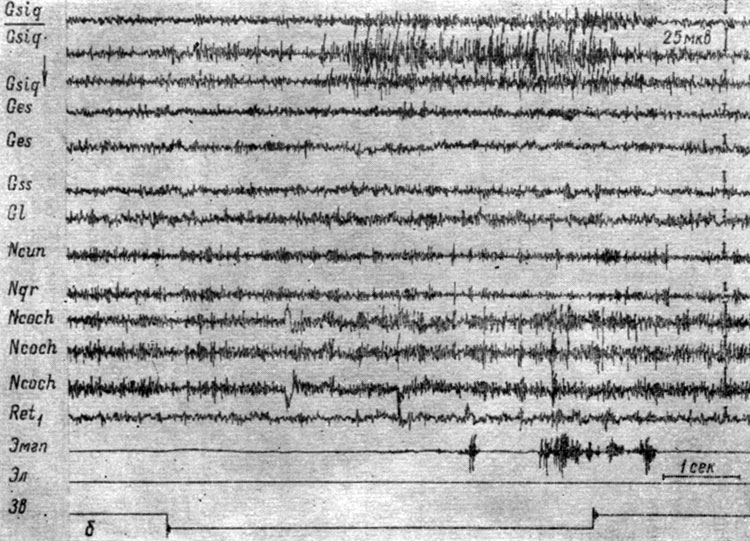
Рис. 47. Изменения ЭГ коры большого мозга и образований продолговатого мозга собаки № 4 в процессе образования дифференцировки на тон 100 гц 59 дб. а - 23-е (опыт № 68 от 27/IV 1959); б - 28-е применение дифференцировочного раздражения (опыт № 73 от 8/V 1959 г. - по Т. С. Наумовой, 1962б)
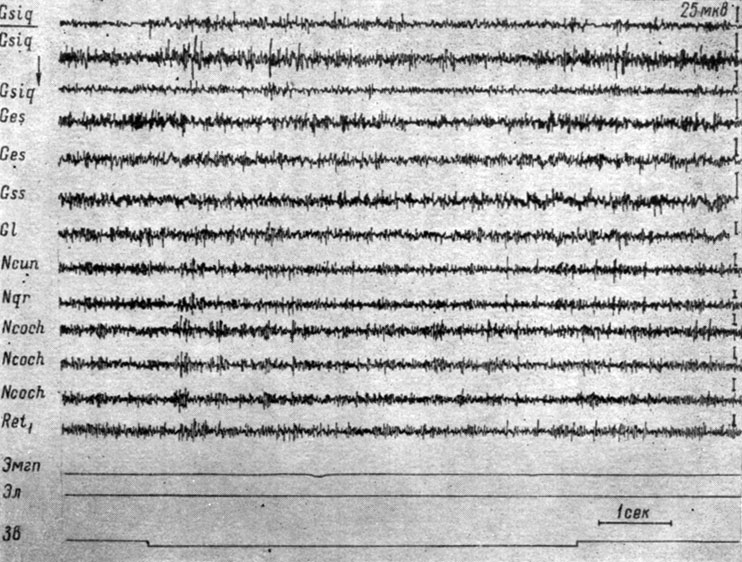
Рис 48. Изменения ЭГ коры большого мозга и образовании продолговатого мозга собаки № 4, наступающие в период упрочения дифференцировки на тон 100 гц 59 дб. (опыт № 87 от 6/VI 1959 г. - по Т. С. Наумовой, 1962б)
Иными словами, формирование дифференцировочного торможения проходит все те стадии, которые сопровождали образование условного оборонительного рефлекса, вплоть до того момента, когда была введена дифференцировка. После этого наступает период, в который действие отрицательного сигнала перестает вызывать видимые изменения ЭЭГ.
Та же последовательность фаз была обнаружена при изучении электрических процессов на других уровнях мозга. У тех животных, у которых I стадия выработки рефлекса отсутствовала, формирование дифференцировочного торможения также не проходило стадию генерализованного снижения электрических колебаний, и двигательная реакция на первых этапах формирования отрицательного рефлекса сопровождалась общим усилением электрических процессов.
Таким образом, тоновые раздражения подпороговой и пороговой интенсивности, электрографическая реакция на которые до выработки дифференцировочного торможения легко угасает, будучи сигналами отрицательной реакции, сначала вызывают движения конечности и сдвиги ЭЭГ, последовательно повторяющие все этапы формирования условных рефлексов, а затем не сопровождаются видимыми изменениями электрической активности. Движения конечности исчезают раньше электрографической картины замыкания.
Если формирование дифференцировочного торможения происходит на звуковые раздражения, по интенсивности значительно превышающие пороговые значения, динамика процессов, сопровождающих эти отрицательные реакции, значительно отличается от только что описанной, но и в этом случае торможение формируется постепенно, проходя те же этапы, которые сопровождают организацию условнорефлекторной реакции на сигналы надпороговой интенсивности.
В начале выработки дифференцировочного торможения на такого рода звуковые раздражения возникают (рис. 49, а - 16-е применение звуковых щелчков в ритме 20 в 1 сек, интенсивность 63 дб у собаки № 4) изменения электрической активности, подобные наблюдаемым при осуществлении условного оборонительного рефлекса на аналогичные звуковые сигналы в стадии концентрации, а именно вслед за генерализованным снижением электрических осцилляций, наиболее отчетливо выступающим в структурах ствола (до 6-12 мкв), регистрируется значительный рост частот и амплитуд электрических колебаний в кохлеарных ядрах (до 20 мкв) и сенсомоторных зонах коры (до 50-75 мкв в записях накладными электродами). В ядрах нежного и клиновидного канатиков, нижнем центральном ядре ретикулярной формации имеет место снижение электрических потенциалов. В большинстве корковых зон незначительно выражен эффект десинхронизации. Следование ритму раздражения нечеткое. В начале выработки дифференцировки эти изменения сопровождаются двигательной реакцией, затем последняя исчезает.
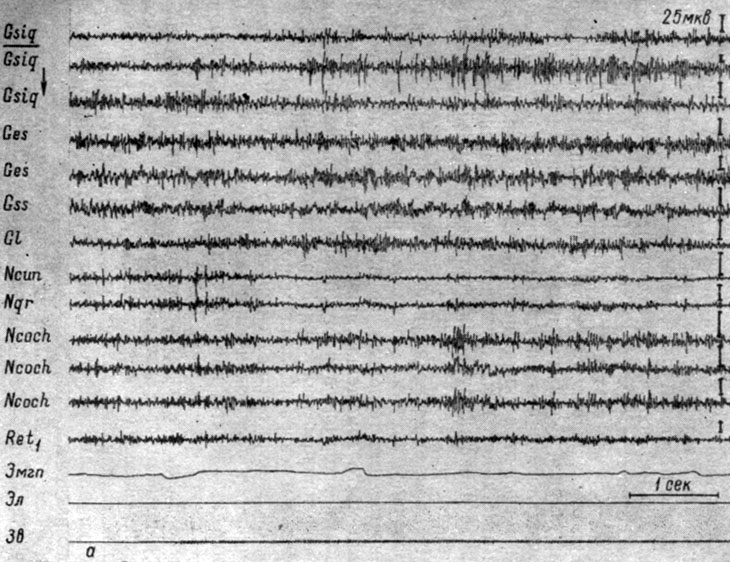
Рис. 49. Изменения ЭГ коры большого мозга и образований продолговатого мозга собаки № 4, наступающие в процессе формирования дифференцировки на щелчки (20 в 1 сек, 63 дб). а - 16-е (опыт № 93 от 2/VII 1959 г.); б - 27-е применение дифференцировочного раздражения (опыт № 104) от 25/IX 1959 г. - по Т. С. Наумовой, 1962б)
На приведенном рисунке в ответ на действие дифференцировочного стимула локальная реакция конечности на звук полностью отсутствовала, но общее движение животного еще имело место (смещение линии ЭМГ). По мере выработки и упрочения торможения отсутствие оборонительной реакции на дифференцировочный сигнал начинает сопровождаться значительным и генерализованным по структурам ствола мозга снижением электрической активности (до нескольких микровольт), длящимся и после окончания раздражения (см. рис. 49, б). Снижение активности наблюдается также в сенсомоторной (до 10-12 мкв) и зрительной (до 8-10 мкв) областях коры. В других корковых зонах (эктосильвиевой и супрасильвиевой извилинах) происходит некоторое нарастание уровня возбуждения, выражающееся в незначительном росте частоты колебаний и нечетком следовании ритму раздражений. Детальный анализ динамики параметров вызванных ответов приводится в конце этого раздела.
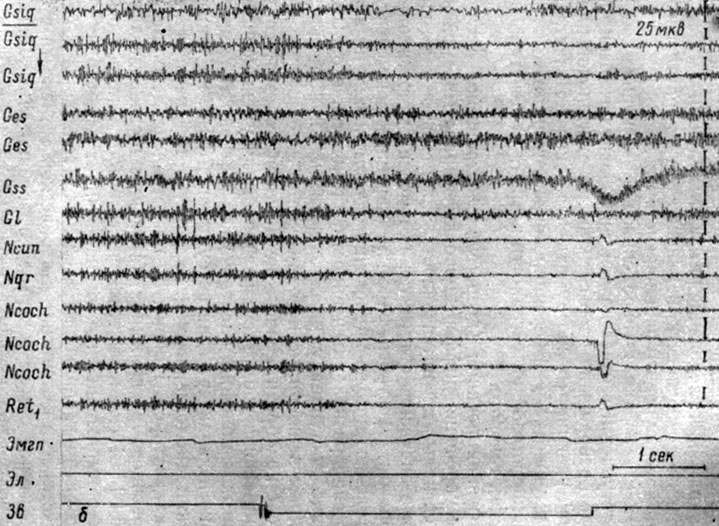
Рис. 49. Изменения ЭГ коры большого мозга и образований продолговатого мозга собаки № 4, наступающие в процессе формирования дифференцировки на щелчки (20 в 1 сек, 63 дб). а - 16-е (опыт № 93 от 2/VII 1959 г.); б - 27-е применение дифференцировочного раздражения (опыт № 104) от 25/IX 1959 г. - по Т. С. Наумовой, 1962б)
Таким образом, более сильные (в смысле вызова электрографической реакции) звуковые стимулы, на которые до сочетаний не удается в полной мере угасить электрографическую реакцию, в качестве дифференцировочных сигналов вызывают генерализованное снижение электрической активности в структурах ствола мозга и реакцию десинхронизации в коре (при записи ее ЭЭГ накладными электродами) и в случае ритмических раздражений следование ритму стимуляции.
Описанные особенности изменений ЭГ характерны и для структур других уровней нервной системы.
Так как генерализованное снижение электрической активности наступает и в ответ на действие физиологически сильных звуков до превращения их в сигналы положительной или отрицательной реакции, можно думать, что такое же электрографическое выражение дифференцировочного торможения на стимулы надпороговой интенсивности зависит от действия раздражителя как такового.
Диффузная реакция (депрессия электрической активности) по мере упрочения дифференцировки, вырабатываемой на звуковые сигналы, по интенсивности значительно превышающие пороговые значения, становится все менее выраженной, и, таким образом, электрографические картины, сопровождающие осуществление дифференцировочного торможения на звуковые раздражения разной интенсивности, становятся сходными. Это положение наступает у разных животных при разном количестве применений тормозного стимула.
Интересно обратить внимание на то обстоятельство, что по мере применения тормозного раздражителя уменьшение уровня диффузных изменений электрической активности выражается не только в характере сдвигов суммарной ЭЭГ, но также в исчезновении аналогов вызванных ответов из "незаинтересованных" анализаторов. На рис. 50 представлено действие дифференцировочного раздражения (звуковых щелчков, следующих в ритме 20 в 1 сек., их интенсивность 63 дб), которое вызывает отчетливо выраженное нарастание амплитуд колебаний и следование ритму раздражения в слуховой зоне коры и не вызывает отчетливого изменения электрической активности в остальных структурах ствола и коры мозга собаки № 3. Лишь в первую секунду действия звука имеет место непродолжительный (1,2 сек) эффект десинхронизации, совпадающий с высокоамплитудным отклонением в зрительной зоне коры. Весь же период действия звукового сигнала высокоамплитудные колебания в коре латеральной извилины отсутствуют, но они появляются в четко выраженной форме сразу же после окончания действия звукового сигнала. На рис. 26 были приведены ЭЭГ той же собаки, записанные в момент применения звукового раздражения более слабой интенсивности (тон 500 гц 49 дб), но являющегося сигналом условной реакции. Отчетливо видно множество волн типа вызванных потенциалов в зрительной зоне коры головного мозга.
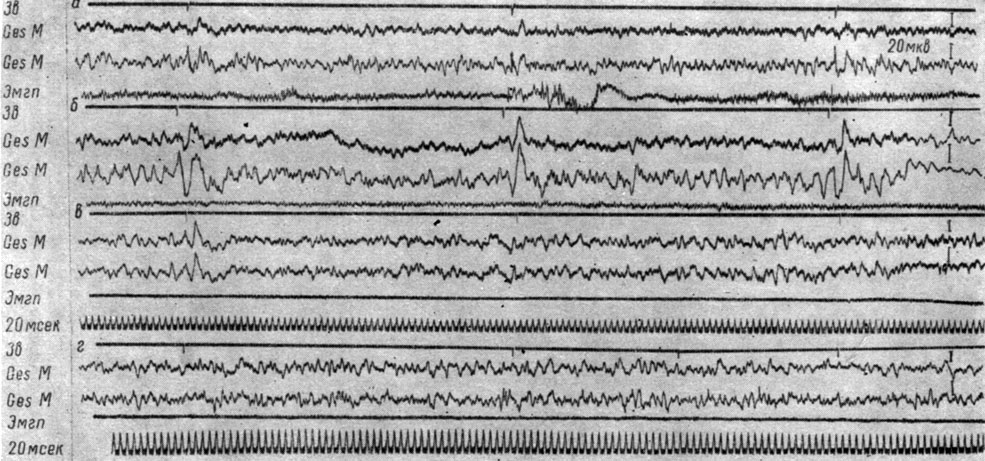
Рис. 50. Изменения ЭГ коры большого мозга и структур продолговатого мозга собаки № 3, наступающие при осуществлении дифференцировочного торможения на 18-е применение щелчков (20 в 1 сек, 63 дб, опыт № 73 от 20/V 1959 г.)
Детальный анализ параметров первичных вызванных ответов, появляющихся в корковом конце сигнального анализатора при действии дифференцировочного раздражения (звуковых щелчков в ритме 1 в 1 сек), показал, что характер их изменений зависит от этапа формирования дифференцировочного торможения, а также от порядкового номера щелчка в серии, служащей сигналом тормозной реакции.
Изучение параметров вызванных ответов на включение дифференцировочного стимула, т. е. на первый щелчок, показало, что они претерпевают в процессе образования и упрочения отрицательной реакции те же изменения, что и при формировании условной реакции, а именно, по мере выработки дифференцировки происходит сначала возрастание, а затем постепенное снижение амплитуды первой позитивной, негативной и второй позитивной компоненты ответа.
Различия между положительными и отрицательными сигналами выражаются лишь в динамике ответов на последующие щелчки. Сказанное иллюстрируют рис. 51 и 52. На рис. 51 представлены ЭЭГ эктосильвиевой извилины у собаки № 19 в разные периоды формирования дифференцировочного торможения. Видно, что величина вызванного ответа на первый щелчок после 10 применений тормозного сигнала (см. рис. 51, б) значительно превышает величину аналогичного ответа при первых применениях этого раздражителя (см. рис. 51, а). В ответ на включение сигнала после 70 его применений регистрируются ответы значительно меньшей амплитуды (см. рис. 51, в). В дальнейшем, когда число применений дифференцировочного стимула достигает 190-250 и больше, вызванные ответы перестают регистрироваться (см. рис. 51, г). Исчезновение вызванных потенциалов на действие первого щелчка в серии, служащей сигналом дифференцировочного торможения, происходит в тот же период, когда перестают регистрироваться вызванные потенциалы и на действие положительных сигналов оборонительной реакции.
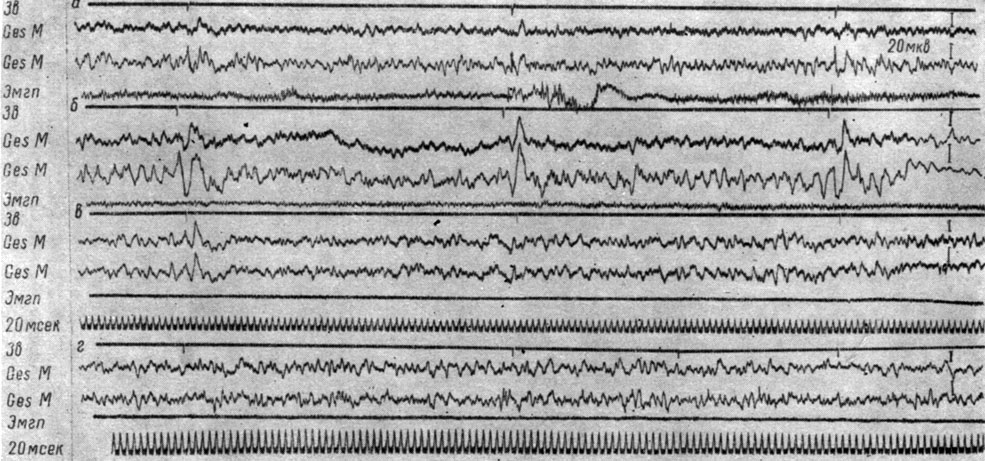
Рис. 51. Изменения вызванных потенциалов в разных участках первичной проекционной корковой слуховой зоны собаки № 19 при формировании дифференцировочного торможения на ритмические (1 в 1 сек) звуковые раздражения (щелчки 56 дб). а - 7-е применение (опыт 18 от 11 /VI 1964 г.); б - 51-е применение (опыт № 29 от 26/VI 1964 г.); в - 233-е применение (опыт № 95 от 8/XII 1964 г.); г - 251-е применение (опыт № 100 от 16/ХII 1964 г. - по T. С. Наумовой и Н. С. Поповой, 1967а)
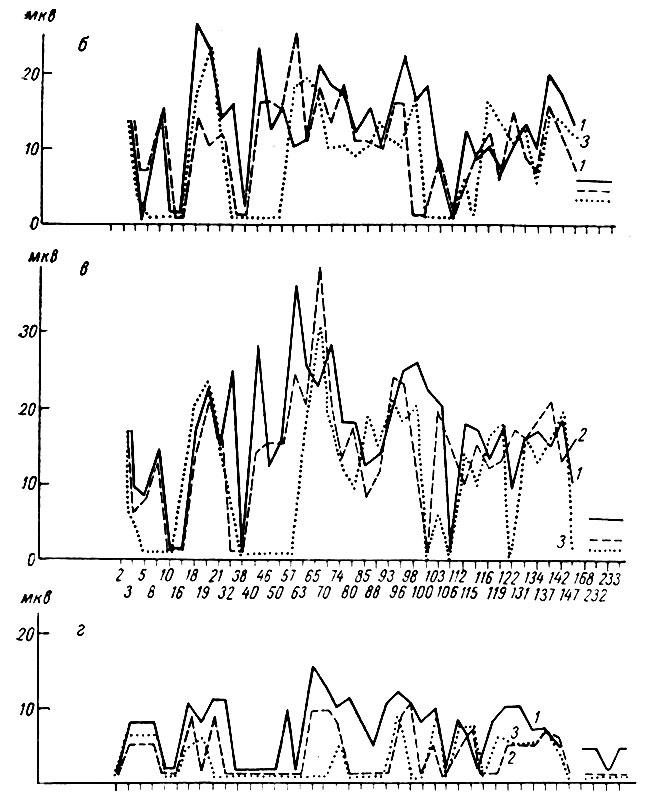
Рис. 52. Динамика амплитуды разных фаз первичных вызванных потенциалов при выработке дифференцировки на щелчки 1 в сек, 56 дб (собака № 19). Обозначается б, в, г, те же, что на рис. 22. 1 - амплитуда ответа на 1-й щелчок; 2 - на 2-й щелчок и 3 - на 3-й щелчок (по Т. С. Наумовой и Н. С. Поповой, 1967в)
На рис. 52 представлены результаты вычисления величины I позитивной, негативной и II позитивной компенент вызванных ответов центральной территории коркового конца слухового анализатора на первый (непрерывная линия), второй (пунктирная линия) и третий (линия точек) щелчки в серии, служащей сигналом дифференцировки. Видно, что у этой собаки возрастание величины первых трех компонент вызванного ответа на первый щелчок наступало после 10 применений дифференцировочного стимула и длилось до 70 проб, после чего амплитудная компонента вызванного ответа волнообразно начала уменьшаться, вплоть до полного исчезновения вызванных потенциалов, которое наступило после 250 применений тормозного раздражителя.
Сопоставление величины вызванных ответов на первый и последующие два щелчка показало, что в период увеличения этих ответов на первый щелчок происходит увеличение их (но менее выраженное) и на последующие щелчки (см. рис. 51, б и 52) подобно тому, что имело место при применении условных положительных сигналов. В период снижения амплитуды ответов на первый щелчок уменьшается величина вызванных потенциалов на второй и третий щелчки. К концу последнего периода, незадолго до исчезновения вызванных потенциалов, наступает момент, когда вызванные ответы появляются только на первый щелчок, на следующие его действия они отсутствуют (см. рис. 51, б). Иногда удается заметить, что сначала исчезают ответы на третий щелчок, а затем на второй и, наконец, первый. Так, например, у той же собаки № 19 реакция на третий щелчок перестала регистрироваться после 178-го применения тормозного сигнала, на второй и третий - после 221-й его пробы.
Все сказанное в отношении динамики амплитуды ответов на первый и последующие щелчки касается всех трех компонент вызванного потенциала (см. рис. 52).
В соответствии с двумя фазами изменений амплитудной характеристики вызванных ответов менялись их латентный период и длительность. Латентный период начала вызванного ответа, время до максимума позитивной и время до максимума негативной фаз ответа в первый период укорачивается, а затем постепенно удлиняется. Сказанное иллюстрирует рис. 53, построенный на основании измерений латентного периода компонент вызванного ответа на три щелчка, служащих дифференцировочным сигналом, у собаки № 19. Ответы на второй и третий щелчки (пунктирная линия и линия точек) наступают при выработке дифференцировочного торможения с тем же, большим или меньшим латентным периодом по сравнению с ответом на первый щелчок.
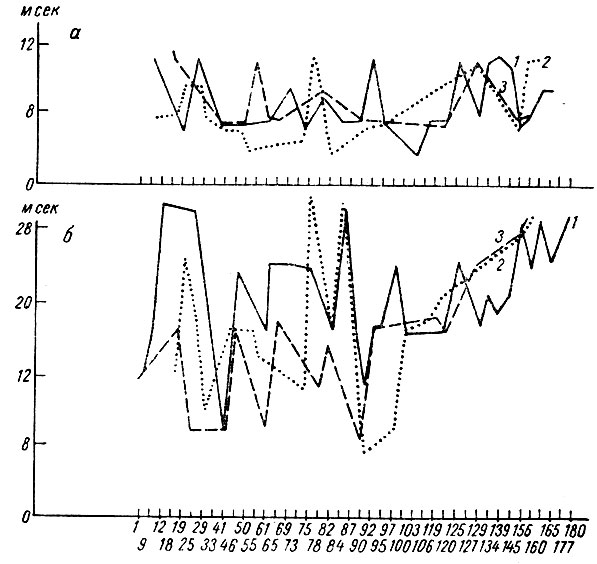
Рис. 53. Динамика латентного периода первичных вызванных потенциалов при выработке дифференцировки на щелчки 1 в сек, 56 дб (собака № 19). Обозначения а, б, в те же, что на рис. 23. Обозначения 1, 2, 3 те же, что на рис. 52 (по Т. С. Наумовой и Н. С. Поповой, 1967в)
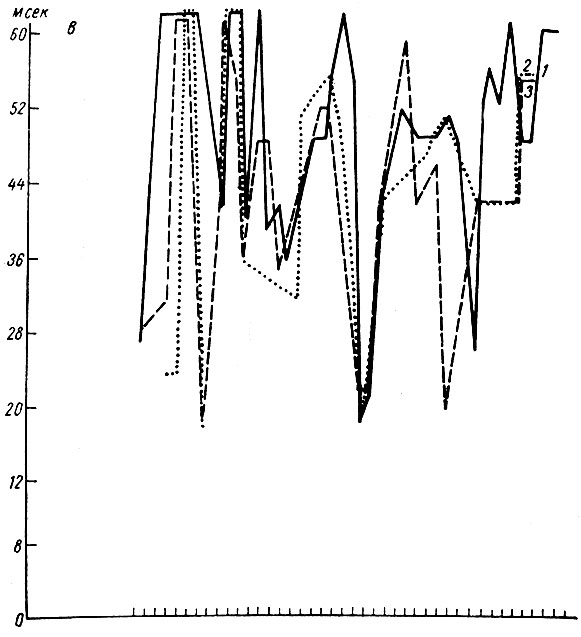
Рис. 53. Динамика латентного периода первичных вызванных потенциалов при выработке дифференцировки на щелчки 1 в сек, 56 дб (собака № 19). Обозначения а, б, в те же, что на рис. 23. Обозначения 1, 2, 3 те же, что на рис. 52 (по Т. С. Наумовой и Н. С. Поповой, 1967в)
Что касается длительности трех компонент вызванных потенциалов, то она сначала нарастает (вместе с увеличением амплитуды ответа) и снижается на фоне снижения их величины (рис. 54). Как видно на графике, снижение величины вызванных потенциалов к концу выработки рефлекса сопровождается вновь увеличением длительности ответов, которые после этого исчезают.
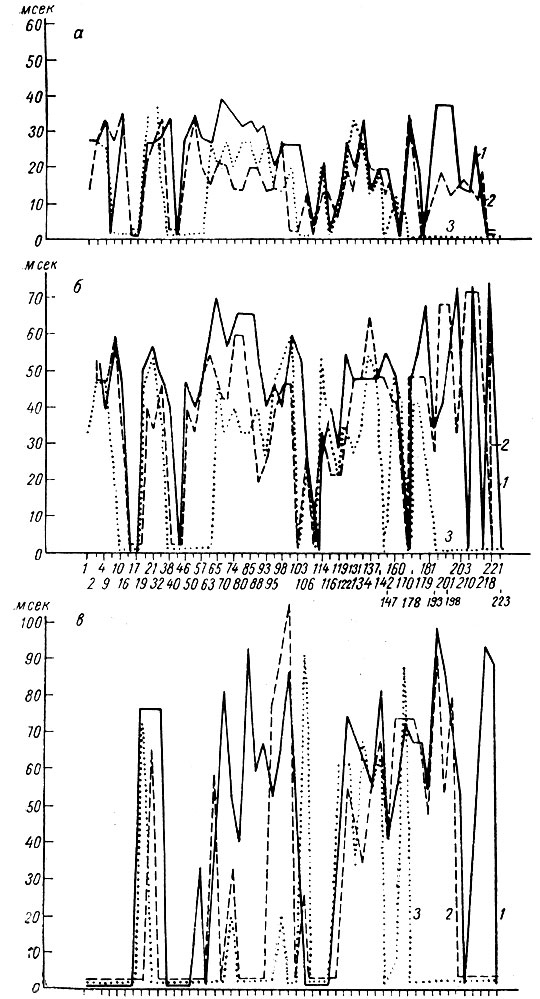
Рис. 54. Динамика длительности разных фаз первичных вызванных потенциалов при выработке дифференцировки на щелчки 1 в сек, 56 дб (собака № 19). Обозначения а, б, в те же, что на рис. 24. Обозначения 1, 2, 3 те же, что на рис. 52. (по Т. С. Наумовой и Н. С. Поповой, 1967в)
Итак, при выработке дифференцировочного торможения наступают сдвиги ЭГ, последовательно повторяющие все этапы формирования условных рефлексов, а затем применения дифференцировочного стимула не сопровождаются видимыми изменениями электрической активности. Отсутствие заметных изменений ЭГ касается всех изученных образований мозга: кохлеарных ядер, ядер нежного и клиновидного канатиков, внутреннего коленчатого тела, задних бугорков четверохолмия, ядер ретикулярной формации ствола мозга, территорий коры и т. д., т. е. как системы взаимодействующих анализаторов, так и других, условно говоря, межанализаторных зон.
Если выработка дифференцировочного торможения происходила на непрерывные звуковые сигналы, которые до выработки рефлексов вызывали, несмотря на многократные применения, выраженные сдвиги электрической активности (депрессию электрических процессов в стволовых отделах мозга, а также эффект десинхронизации электрических колебаний при отведении ЭЭГ от территорий коры накладными электродами), на всех этапах формирования отрицательной реакции на такие звуковые стимулы, по интенсивности значительно превышающие пороговые значения, превалировали процессы депрессии электрической активности в стволе и десинхронизация ее в коре головного мозга. Однако и в случае действия надпороговых тормозных раздражений последние переставали, в конце концов, сопровождаться видимыми сдвигами ЭЭГ.
Сопоставление электрографических картин активности, сопровождающих тормозные реакции на звуковые сигналы разной интенсивности, показывает, что эффект депрессии электрических потенциалов в ответ на действие достаточно интенсивных дифференцировочных стимулов в период еще недостаточно упроченного отрицательного рефлекса определяется физиологическими свойствами сильного звукового раздражения.
Если формирование дифференцировочного торможения происходило на интенсивные ритмические (1 в 1 сек) раздражения (щелчки), описанным ЭГ сопутствовали изменения параметров вызванных ответов в сигнальном анализаторе, которые зависели от этапа формирования дифференцировочного торможения, а также от порядкового номера щелчка в серии, служащей сигналом тормозной реакции. Изучение динамики амплитудной характеристики, латентного периода и длительности первых трех компонент вызванного ответа на включение дифференцировочного стимула, т. е. на первый щелчок, показало, что они претерпевают в процессе образования и упрочения отрицательной реакции те же изменения, что и при фо