




Глава IV. Взаимодействие специфической и неспецифической афферентации и его роль во второй период концентрации (IV стадии) условного оборонительного рефлекса и на V стадии формирования условного оборонительного рефлекса
Как широко известно, теория условных рефлексов И. П. Павлова предусматривает возможность разной структурной организации замыкательного процесса. Организация рефлекса, по-видимому, меняется по мере его выработки. Если на первых этапах становления рефлекса (в стадиях генерализации) условнорефлекторное возбуждение широко охватывает все субкортикально-стволовые и корковые формации мозга, а третья стадия (I период концентрации рефлекса) связана с участием систем взаимодействующих анализаторов, то по мере дальнейшего упрочения и известной автоматизации реакции наступает новое изменение организации условнорефлекторного возбуждения, впервые замеченное в опытах М. Н. Ливанова и К. Л. Полякова (1945), М. Н. Ливанова и сотр. (1951), В. В. Артемьева и Н. И. Безладновой (1952) и подтвержденное затем Morrell (1957), Gastaut и сотр. (1957), М. Я. Рабиновичем (1961) и многими другими исследователями. В этой стадии, обозначенной М. Н. Ливановым стадией концентрации оборонительного условного рефлекса, изоритмичная с условным (световым) раздражением электрическая активность появлялась только в сенсомоторной области коры мозга кролика. Аналогичное наблюдение было сделано В. В. Артемьевым и Н. И. Безладновой (1952), которые, исследуя электрические процессы в слуховой области коры мозга кошки при образовании условного оборонительного рефлекса на звук, обнаружили, что, когда количество сочетаний доходило до 250 и более, в отдельных случаях наблюдались условнорефлекторные реакции при отсутствии первичных электрических ответов слуховой проекционной области. В процессе выработки условного оборонительного движения происходит ограничение территории и изменение характера ответов, постепенно концентрирующихся в тех пунктах сенсомоторной зоны коры кошек, которые связаны с подкрепляющим движением (А. Б. Коган, 1960). Подтверждение данных, свидетельствующих об изменении локализации дуги рефлекса, получено и на собаках. Так, М. Я. Рабинович (1958, 1961) в стадии концентрации оборонительных условных рефлексов у собак наблюдал снижение уровня электрической активности в корковом конце анализатора, воспринимающего условный сигнал (слуховой коре). Г. Т. Сахиулиной было замечено в той же стадии выработки, и особенно при переключении, усиление активности лишь в лобно-теменной области мозга. В дальнейшем (Г. Т. Сахиулина, 1958) было уточнено, что активация наступала в двух участках: на границе gyr. coronalis и gyr, ectosylvius anterior и на стыке полей зрительного, слухового и соматосенсорного анализатора, в то время как в других зонах мозга электрические процессы изменялись мало. Тот же факт концентрации был обнаружен и на людях. Так, в исследованиях Gastaut и сотр. (1957), А. Гасто, А. Роже (1958) было обнаружено, что выработка речедвигательных условных рефлексов у человека сопровождается вслед за периодом генерализованных изменений ЭЭГ коры локальной блокадой аркообразного ритма сенсомоторной области коры, контралатеральной реагирующей конечности. С. М. Бабиян (1960) подтвердила эти наблюдения. В большой серии работ, посвященных исследованию частотно-специфического ответа на кроликах, кошках и обезьянах, также было показано, что при сочетании звука с ритмическим светом на смену генерализованной десинхронизации на звук приходят локальные процессы в зрительной зоне коры, которые сначала выражаются в воспроизведении звуком ритма светового раздражения, а затем локальной десинхронизации в этой области (Morrell, 1957; Morrell, Naguet, 1956; Morrell и сотр., 1957; Yoshii, Hockaday, 1958; Bergel и сотр., 1959; Morrell и сотр., 1960). Интересно отметить, что тот же порядок изменения ответов наблюдается и при сочетании индифферентного раздражения с ритмической электрической стимуляцией подкорковых структур. Так Yoshii и сотр. (1960) на неанестезированных кошках и собаках, используя раздражения ядерных структур (nucl. lateralis posterior, nucl. medialis dorsalis thalami, ретикулярной формации, миндалевидного ядра, nucl. caudatus, centrum medianum) в ритме 3-10 в 1 сек, которым предшествовали тон или свет, показали, что на смену генерализованным вызванным потенциалам с последующей генерализованной десинхронизацией коры приходят колебания в ритме 5 в 1 сек в соответствующих подкорковых структурах.
Таким образом, во всех этих исследованиях выступило то обстоятельство, что по мере упрочения реакции ответы на действие условного сигнала наблюдаются в корковом безусловнорефлекторном центре или центре, активирующемся при подкреплении, что в процессе упрочения оборонительного рефлекса "навязанные" ритмы наблюдаются только в сенсомоторной зоне коры и отсутствуют в зрительной области коры при действии ритмического светового условного раздражения. М. Н. Ливанов и сотр. (1951) считают, что путь условнорефлекторного возбуждения в процессе выработки вместо корково-коркового становится подкорково-корковым, ибо в наружном коленчатом теле продолжают регистрироваться ответы, следующие в ритме условной стимуляции. Исчезновение вызванных потенциалов из условнорефлекторного коркового очага при значительном упрочении условной реакции, по мнению В. В. Артемьева и Н. И. Безладновой (1952), также свидетельствует об изменении направления условнорефлекторного возбуждения, ибо появляющиеся в это время в сенсомоторной зоне коры вызванные ответы следуют с латентным периодом, более коротким, чем те, которые регистрируются в первичной проекционной зоне слуха. Д. С. Воронцов (1960) также разделял эту точку зрения, полагая, что многолетние следы не могут сохраняться в самих воспринимающих системах.
Приведенные выше электрофизиологические наблюдения позволили предположить, что в процессе выработки рефлекса происходит изменение его локализации. Если на первом этапе замыкание осуществляется по типу кора-кора, в дальнейшем же оно происходит, видимо, без активного участия коркового уровня сигнального анализатора. Отсутствие условнорефлекторных изменений активности в кортикальных звеньях сигнального анализатора во второй стадии концентрации свидетельствует о том, что эти звенья прекращают играть активную роль в формировании временной связи.
Встает, естественно, вопрос о том, какими путями в последнем случае распространяется условнорефлекторное возбуждение с субкортикального уровня сигнального анализатора к корковому безусловнорефлекторному центру. Нужно признать, что путей проведения от стволового уровня зрительного, слухового и других анализаторов к сенсомоторной коре достаточно много. Но в связи с тем, что некоторые из ядер таламической диффузной проекционной системы локально проецируются в сенсомоторную зону коры, А. Гасто и А. Роже (1958) полагают, что условнорефлекторное возбуждение к коре следует по неспецифическим путям, ранее участвовавшим в передаче безусловного сигнала. Последнюю точку зрения разделяют Yoshii и сотр. (1958а), Н. Иошии и сотр. (1958б), которые пришли к выводу, что при образовании оборонительных и пищевых условных рефлексов у собак, а также условнорефлекторном вызове так называемых частотно-специфических ответов, замыкание осуществляется благодаря тому, что условнорефлекторное возбуждение достигает безусловного коркового центра с помощью таламической неспецифической проекционной системы. В отношении пищевых условных рефлексов определенно можно думать, что условнорефлекторное формирование активности коркового пищевого центра, расположенного в gyr. orbitalis и gyr. sylvius anterior, идет с участием некоторых неспецифических ядер зрительного бугра (Л. Г. Трофимов и Н. Н. Любимов, 1960).
Прямых доказательств участия ретикулярных структур мозга и других межанализаторных систем в проведении возбуждения из субкортикальных отделов анализатора условного сигнала в кортикальные зоны кожно-двигательного анализатора на стадии упроченных оборонительных рефлексов пока нет, но такое предположение имеет основания.
Как показали наши наблюдения, активация процессов на действие условного сигнала в системе сигнального анализатора по мере сочетаний становится все менее и менее выраженной. В системе слухового анализатора нарастание возбуждения почти не проявляется, и изменения электрической активности в кохлеарных ядрах, внутреннем коленчатом теле, коре эктосильвиевой и сильвиевой извилин становятся аналогичными сдвигам, происходящим в других структурах мозга.
На рис. 15, а, где представлена динамика амплитудной характеристики электрографической реакции разных формаций мозга при образовании условного оборонительного рефлекса на тон 500 гц 48 дб у собаки № 4, видно, что в IV стадии формирования условного рефлекса происходит постепенное уменьшение степени усиления процессов возбуждения в системе слухового анализатора и, в частности, в его первичных переключательных реле - кохлеарных ядрах. Нивелировка изменений ЭГ в кохлеарных ядрах делает сходными процессы в кохлеарных ядрах, ядрах нежного и клиновидного канатиков, нижнем центральном ядре ретикулярной формации, которые выражаются в незначительном возрастании активности. Несколько снижается и уровень активирования коркового конца кожно-двигательного анализатора (рис. 15, б).
В IV стадии образования условного оборонительного рефлекса включение тона 500 гц 48 дб у собаки № 4 (см. рис. 16) сопровождается появлением вызванных потенциалов в коре средней эктосильвиевой извилины, которые по величине значительно уступают ответам в предыдущий период формирования рефлекса.
Что касается следовых процессов, то на IV стадии выработки рефлекса у той же собаки они также становятся значительно менее выраженными как в стволовых (см. рис. 17, а), так и в кортикальных структурах (см. рис. 17, б). Их длительность в тех и других образованиях не превышает 1 сек (см. рис. 18).
Сопоставление аналогичных изменений электрической активности разных структур мозга собаки № 3 с вызванными ответами, появляющимися на включение условного сигнала (тона 500 гц 48 дб) в ЭЭГ первичной проекционной корковой зоны слуха, показало, что в IV фазе выработки рефлекса происходит постепенное снижение амплитуды вызванных потенциалов. Сказанное иллюстрирует рис. 19, на котором видно, что в IV стадии образования условного рефлекса уменьшаются вызванные ответы не только в коре эктосильвиевой извилины, но также в коре сигмовидной извилины по сравнению с ответами в III фазе выработки рефлекса.
Снижение уровня активации бульбарных и кортикальных звеньев сигнального анализатора по мере упрочения условного рефлекса может выражаться и в появлении медленных колебаний, однако последние охватывают не все его звенья. На уровне продолговатого мозга в трапециевидном теле - верхней оливе, - медленные волны не регистрируются, в них происходит усиление процессов возбуждения. Экзальтация активности наступает и в крупноклеточном ядре ретикулярной формации.
Количественный анализ изменений электрической активности, наступающих при действии условного сигнала в IV стадии его образования у собаки № 11, показал, что в этот период уменьшается степень активации кохлеарных ядер (рис. 30, 38) и коры сильвиевой извилины, ЭЭГ которой отводится с помощью погружных электродов. Более того, в этих формациях в ответ на действие условного сигнала появляются медленные волны (показаны на графиках изменений уровня активности кохлеарных ядер кружками). Одновременно в крупноклеточном ядре ретикулярной формации регистрируется эффект активации. Следовые процессы в исследованных образованиях на этом этапе формирования временной связи электрографически не проявляются.
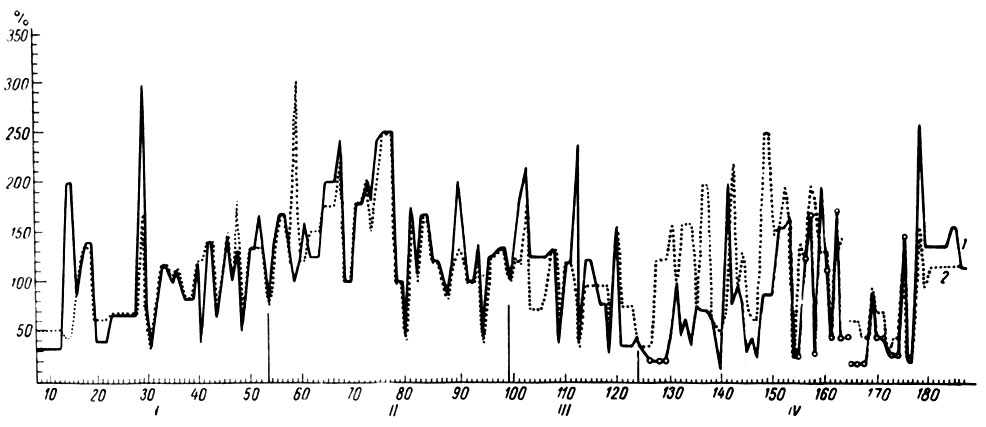
Рис. 38. Амплитудная характеристика ЭГ условной реакции при формировании оборонительного рефлекса на тон 500 гц 100 дб (собака № 11). Обозначения те же, что на рис. 30
Особенно отчетливо появление медленных колебаний в системе сигнального анализатора и эффект активации в гигантоклеточном ядре ретикулярной формации обнаружились у той же собаки № 11 при формировании условного рефлекса на более сильные звуковые сигналы (тон 500 гц 100 дб) (см. рис. 38). В третьей стадии выработки этого рефлекса условная реакция протекала на фоне слабой экзальтации активности (рис. 39, а, 124-е сочетание), которая следовала за кратковременным (250 мсек) периодом генерализованной депрессии. Нарастание осцилляций в кохлеарных ядрах и слуховой зоне коры было несколько более выражено, чем в других территориях. Уже при 125-м сочетании (рис. 39, б) кратковременный период генерализованного угнетения электрических колебаний сопровождается их усилением в коре коронарной извилины, крупноклеточном ядре ретикулярной формации и трапециевидном теле на границе с верхнеоливарным комплексом ядер. Напротив, в кохлеарных ядрах и коре сильвиевой и эктосильвиевой извилин наблюдается появление медленных волн в ритме 5-6 в сек, перемежающихся с периодами депрессии активности. Поражает удивительное сходство в процессах, происходящих в крайних точках слухового анализатора (первичном переключательном реле и корковом его конце).
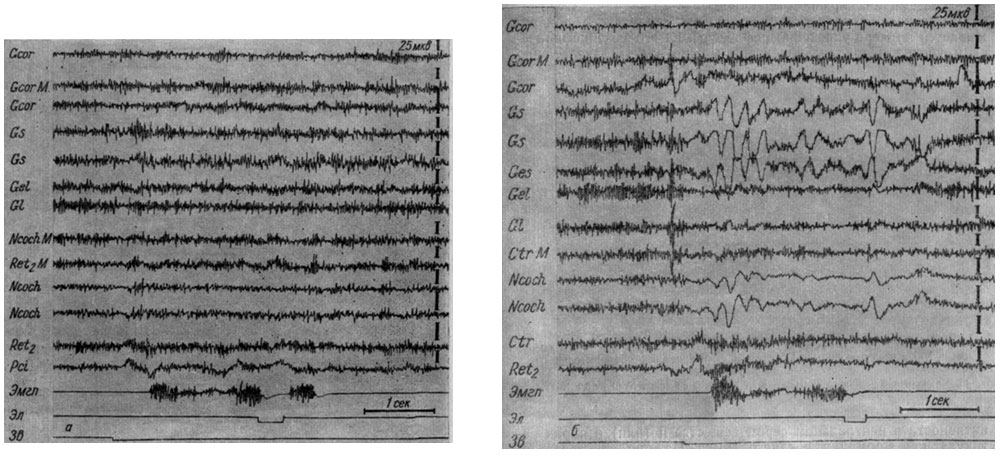
Рис. 39. Изменения ЭГ структур коры и продолговатого мозга собаки № 11 наступающие в IV стадии образования условного оборонительного рефлекса на тон
Дезактивация процессов в слуховом анализаторе обнаруживается по мере упрочения рефлекса и на его мезенцефалическом уровне. Параллельно с этим можно видеть экзальтацию активности в центральном сером веществе и (или) в ядрах ретикулярной формации среднего мозга. На рис. 40 представлены ЭГ структур среднего мозга и коры собаки № 2 при 166-м применении условного сигнала (тона 500 гц 48 дб). Видно, что через 0,3 сек после начала действия звука наступает снижение величины электрических осцилляций в коре супрасильвиевой, коронарной извилин, внутреннем коленчатом теле (в последнем обнаруживаются длительные смещения уровня активности) и дорсальном отделе ретикулярной формации среднего мозга (nucl. cuneiformis). Периоду депрессии активности в указанных структурах соответствует экзальтация ее в центральном сером веществе среднего мозга и эффект прерывистой активации на уровне заднего двухолмия. Отмеченные изменения предшествуют появлению выраженной моторной реакции реагирующей конечности. В последействии рефлекса происходит процесс генерализованного угнетения электрических потенциалов, и лишь в записях ЭЭГ коры коронарной извилины и ЭГ центрального серого вещества ствола сохраняются более высокоамплитудные, чем в других зонах мозга, колебания. Описанные изменения резко отличаются от наблюдавшихся на III стадии образования рефлекса (см. рис. 32).
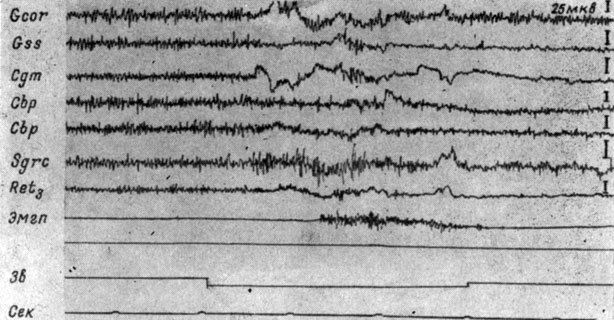
Рис. 40. Изменения ЭГ структур коры большого и среднего мозга собаки № 2, наступающие в IV стадии формирования оборонительного условного рефлекса. 166-е применение условного сигнала - тона 500 гц 48 дб (опыт № 61 от 3/I 1959 г.)
На рис. 41 иллюстрируются изменения ЭГ на уровне среднего мозга и коры при осуществлении условного рефлекса на IV стадии его выработки у собаки № 16. Видно, что при 174-м применении условного сигнала (тон 500 гц 48 дб) вместо преимущественного усиления электрических потенциалов в коленчатом теле, которое имело место в III стадии образования рефлекса, и, в частности, при 62-м применении условного раздражения (рис. 33, б), наступает экзальтация электрических процессов в ретикулярной формации (nucl. cuneiformis) и центральном сером веществе среднего мозга. В сенсомоторной и слуховой зонах коры при этом происходит реакция десинхронизации (снижение амплитуд и нарастание ритма электрических осцилляций), а во внутреннем коленчатом теле, заднем двухолмии и красном ядре - эффект нарастания ритма колебаний.
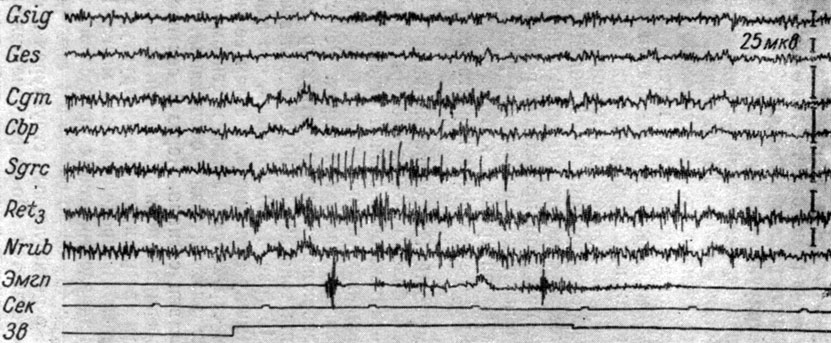
Рис. 41. Изменения ЭГ структур коры большого мозга и среднего мозга собаки № 16, наступающие в IV стадии формирования оборонительного условного рефлекса. 174-е применение условного сигнала - тона 500 гц 48 дб (опыт № 69 от 20/VI 1958 г. - по Т. С. Наумовой, 1965)
Что касается изменений ЭГ, сопровождающих IV стадию выработки рефлекса, в более высоких субкортикальных структурах, то из обследованных образований отчетливо выявилась связь между изменениями, происходящими в ретикулярной формации ствола мозга и хвостатых ядрах. Регистрация ЭГ коры и разных подкорково-стволовых структур во время и после 133-го сочетания тона 500 гц 30 дб с болевым подкреплением у собаки № 15 (рис. 42, а) показала, что действие тона вызвало сначала вспышку активности, а затем ее снижение во всех регистрируемых структурах. Лишь в сенсомоторной зоне коры наступает рост электрических осцилляций, продолжающийся и в последействии сигнала. Через 1 сек после прекращения стимуляции возникает период мощной экзальтации электрической активности в ретикулярных структурах среднего (где он особенно силен) и продолговатого мозга. По сравнению с фоном величина электрических процессов растет в 4-5 раз, а их частота - с 45-50 до 60-65 в 1 сек. Через 2,5 сек активация процессов в ретикулярных структурах и сенсомоторной зоне коры прекращается. По мере сочетаний описанные следовые процессы начинают регистрироваться в ответ на действие самого сигнала. На рис. 42, б представлено 171-е сочетание тех же раздражителей у той же собаки. Отчетливо видно, что звук вызывает слабую десинхронизацию активности в корковых структурах, а в хвостатом ядре - возрастание ритма (с 48-50 до 55-58 в 1 сек) и величины (почти вдвое) электрических колебаний, которое продолжается и после осуществления рефлекса. В ретикулярной формации среднего мозга, (nucl. subcuneiformis), а также черной субстанции частота колебаний увеличивается от 45-50 до 58-60 в 1 сек, а их амплитуды достигают 70-80 мкв (при величине их в фоновой записи 30-35 мкв). В прочих образованиях отмечается эффект слабого возбуждения. Через 5 сек в последействии сочетания регистрируется остаточная активация преимущественно в коре, хвостатых ядрах, ретикулярной формации и пирамидах.
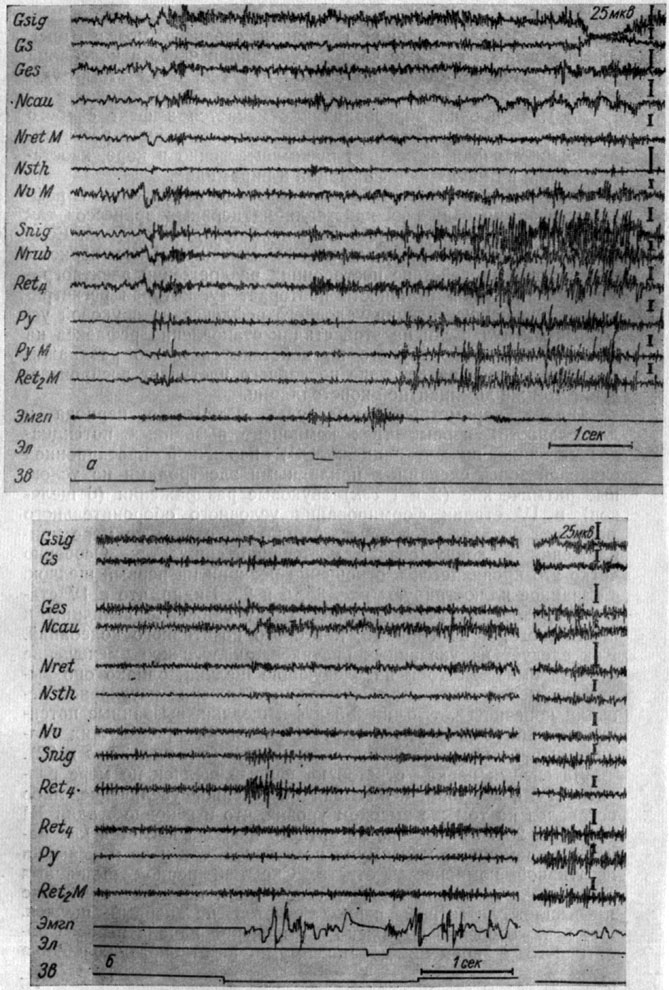
Рис. 42. Изменения ЭГ коры большого мозга и подкорково-стволовых структур собаки № 15, наступающие в IV стадии формирования оборонительного условного рефлекса. а - 133-е, б - 171-е сочетание тона 500 гц 30 дб с электрокожным раздражением правой передней лапы (а - опыт № 44 от 2/I 1962 г.); б - опыт № 64 от 23/II 1962 г - по Т. С. Наумовой, 1965
В IV стадии выработки оборонительного условного рефлекса сформировавшаяся констелляция нервных процессов так же, как и в предыдущих стадиях, является доминантной. Если движение конечности происходит в межсигнальные периоды или в ответ на действие посторонних раздражений электрографическая картина активности повторяет ту, которая регистрируется при осуществлении условного рефлекса на звуковой условный стимул. Если на этой стадии становления рефлекса на звук начать выработку его на действие светового раздражителя, то в ответ на действие последнего наступает воспроизведение той же доминантной констелляции.
Анализ параметров (амплитуды, латентного периода и длительности) первых трех компонент вызванных потенциалов, возникающих в записях ЭЭГ первичной проекционной слуховой зоны, сделанных накладными электродами на условные ритмические (2 в 1 сек) звуковые раздражения (6 щелчков) в IV стадии формирования условного оборонительного рефлекса показал следующее. Амплитуда ответа по мере приближения к концу стадии постепенно снижается. Особенно четко это проявляется в отношении реакции на первый щелчок. Сказанное иллюстрируют рис. 35, б и 22. Видно, что в IV стадии образования рефлекса происходит снижение величины и позитивного, и негативного, и второго позитивного колебаний. Как следует из указанных рисунков, аналогичное уменьшение ответов имеет место и на следующие щелчки, однако оно выражено менее отчетливо. По мере приближения к условной реакции конечности, т. е. на 3-й и 4-й щелчки, вызванные потенциалы либо также уменьшаются, как и на предыдущих стадиях выработки, либо иногда возрастают (см. рис. 37, в и 22).
Латентный период ответов на первый щелчок по мере развития IV фазы либо испытывал постепенное увеличение, либо оставался на том же высоком уровне, что и в конце стадии III (см. рис. 23). Увеличение латентного периода касается как начала и времени до максимума позитивной, так и до максимума негативной компоненты ответа. Скрытый период вызванных ответов на третий и четвертый щелчки к концу стадии даже превышает латентный период ответов на первый щелчок. Это было особенно выражено в отношении начала первого позитивного и времени до максимума негативного колебания вызванного ответа у собаки № 20 (см. рис. 36). На этом графике видно, что начиная с 155-го сочетания двигательная условная реакция сопровождается возрастанием латентного периода вызванных потенциалов.
Одновременно с удлинением латентного периода и уменьшением величины вызванного ответа на первый щелчок из 6, служащих сигналом условной реакции в IV фазе формирования рефлекса, происходит дальнейшее увеличение его длительности. Увеличение длительности касается всех компонент вызванного потенциала (см. рис. 24). Длительность фаз вызванного ответа, так же как и латентный период и амплитуда, меняется и в момент, предшествующий и сопутствующий условнорефлекторной реакции конечности, а именно, если в первых трех стадиях формирования рефлекса условнорефлекторная реакция сопровождалась сокращением, то в IV стадии образования условного рефлекса нередко можно наблюдать увеличение длительности всех компонент вызванного ответа. На рис. 37, в видно, что при 162-м сочетании 6 щелчков и болевого подкрепления амплитуда и длительность компонент вызванного потенциала на 5-й щелчок, совпадающий с условной реакцией, не уменьшается, как в предыдущей стадии (см. рис. 37, б), а, наоборот, увеличивается. Описанные изменения длительности вызванных потенциалов предшествуют их исчезновению.
Итак, изменения ЭГ, сопровождающие IV стадию выработки оборонительного условного рефлекса на звуковые сигналы, выражаются в появлении процессов, охватывающих несколько иную, чем в III стадии, констелляцию нервных центров. Условная реакция на звуковой сигнал подпороговой, пороговой и надпороговой интенсивности на IV этапе выработки рефлекса формируется на фоне локальной активации (возрастания ритма и амплитуд колебаний) электрических процессов, обнаруженной в записях ЭГ погружными электродами от комплекса трапециевидное тело - верхняя олива, крупноклеточного ядра ретикулярной формации продолговатого мозга, ряда ядер ретикулярной формации среднего мозга (nucl. cuneiformis, nucl. subcuneiformis), черной субстанции, центрального серого вещества и хвостатых ядер. Изменения ЭЭГ сенсомоторной зоны коры, наступающие в ответ на действие условного звукового сигнала в записях накладными электродами, выражаются в десинхронизации активности (снижении амплитуд и возрастании ритма электрических колебаний). Лишь у двух животных регистрировался эффект экзальтации электрических осцилляций.
Активация процессов в новой констелляции структур появляется сначала на следах условных рефлексов и лишь затем обнаруживается и в ответ на действие условного сигнала, а также и в межсигнальные периоды.
Новая констелляция, которая создается на IV стадии образования рефлекса, имеет доминантные свойства - она воспроизводится в начале формирования условного оборонительного рефлекса на ритмический свет.
Параллельно с нарастанием уровня возбуждения в трапециевидном теле - верхней оливе, ретикулярной формации (nucl. gigantocellularis, nucl. cuneiformis, nucl. subcuneiformis), черной субстанции, центральном сером веществе, хвостатых ядрах, сенсомоторной зоне коры в момент осуществления условного рефлекса на звук, а также в межсигнальные периоды отсутствуют существенные изменения активности как в большинстве ядер слухового анализатора (кохлеарных ядрах, внутреннем коленчатом теле, коре эктосильвиевой и сильвиевой извилин), так и в других территориях мозга, как-то: гиппокампе, ядрах таламуса, ножках мозжечка, ядрах тройничного нерва и т. п. Осуществление условного рефлекса может сопровождаться появлением медленных волн в системе слухового анализатора (кохлеарных ядрах, внутреннем коленчатом теле, коре сильвиевой, эктосильвиевой извилин).
Локальные процессы наиболее четко выявляются при биполярном способе записи ЭГ погружными электродами. Исчезнувшую локальную активацию ядер слуховой системы на действие условного сигнала можно, однако, вновь вызвать, если начать выработку рефлекса на звуковое раздражение другой частоты или интенсивности. Анализ амплитудной характеристики первых трех компонент вызванного потенциала на условные ритмические (2 в 1 сек) звуковые раздражения (щелчки) в IV стадии формирования рефлекса показал, что амплитуда позитивной, негативной и второй позитивной компоненты ответа по мере приближения к концу стадии постепенно снижается. Особенно четко это проявляется в отношении ответа на первый щелчок.
Латентный период начала и время до максимума позитивной и максимума негативной компоненты ответа либо остается на том же высоком уровне, что и в конце III стадии, либо испытывает постепенное увеличение. Увеличение латентного периода касается начала и времени до максимума позитивной, так и до максимума негативной компоненты ответа и также особенно четко выражено в отношении реакции на первый щелчок.
Одновременно с удлинением латентного периода и уменьшением величины вызванного ответа на первый щелчок в IV фазе формирования рефлекса происходит дальнейшее увеличение его длительности. Увеличение длительности касается всех компонент вызванного потенциала, оно особенно выражено к концу IV периода образования рефлекса.
Амплитуда ответов, латентный период их появления, а также длительность меняются и в момент, предшествующий или сопутствующий началу условной оборонительной реакции (т. е. например, на третий, четвертый щелчки). Амплитуды первых трех компонент вызванных ответов перед двигательной реакцией либо уменьшаются, так же как на предыдущих стадиях образования рефлекса, либо (в некоторых случаях) возрастают. Латентный период начала, время до максимума первой позитивной и до максимума негативной компоненты, а также длительность первых трех компонент ответа на третий-четвертый щелчки, которые следуют перед осуществлением двигательной условной реакции, превышают скрытый период появления и длительность тех же компонент вызванного потенциала на первый щелчок.
Четвертая стадия образования рефлекса совпадала с периодом стандартизации латентного периода эффекторной реакции и периодом наиболее прочных условнорефлекторных ответов.
Как показывают наши данные, на IV стадии выработки рефлекса, т. е. по мере известной автоматизации, так же как в опытах М. Н. Ливанова и сотр. (1951), В. В. Артемьева и Н. И. Безладновой (1952), М. Я. Рабиновича (1961) и других, наступает постепенная нивелировка процессов в корковом конце сигнального (слухового) анализатора, которая этими авторами расценивается как следствие отклонения пути условнорефлекторного возбуждения и развития процесса торможения в этом анализаторе.
По нашим наблюдениям, уменьшение вызванных потенциалов происходит при одновременном удлинении латентного периода и длительности вызванных ответов на первые щелчки в серии, служащей сигналом условной оборонительной реакции (см. рис. 28). Эти данные говорят о том, что механизмы исчезновения вызванных ответов в момент эффекторной реакции в первых трех стадиях выработки рефлекса и механизмы исчезновения вызванных ответов на включение условного сигнала в IV стадии его формирования совершенно различны. Если в первом случае речь шла о маскировке вызванных ответов, то во втором случае исчезновение вызванных потенциалов связано с постепенным понижением возбудимости сигнального анализатора к действию условного раздражения.
Понижение возбудимости сигнального анализатора проявляется также в процессе действия условного сигнала и особенно в момент осуществления эффекторной реакции на той же стадии формирования рефлекса, в момент, непосредственно предшествующий и сопровождающий движение конечности, нередко происходит удлинение