




Глава III. Взаимодействие специфической и неспецифической афферентации и его роль в первый период концентрации (III стадии) условного оборонительного рефлекса
Локальные изменения электрической активности, дающие возможность привести электрографические доказательства участия взаимодействующих анализаторов в замыкании, удалось получить на более поздних стадиях образования рефлекса, когда несколько сглаживались диффузные процессы, маскировавшие эти изменения на первых этапах формирования условной реакции. Фазные сдвиги электрической активности, приходящие на смену генерализованным реакциям, представляют собой отражение тех процессов иррадиации и концентрации в системе анализаторов, вступающих во временную связь, которые были изучены в школе И. П. Павлова по показателям эффекторного условнорефлекторного ответа.
Электрофизиологически явление концентрации процессов было обнаружено в исследованиях М. Н. Ливанова, К. Л. Полякова (1945), М. Н. Ливанова и сотр. (1951), а затем подтверждено и другими исследователями (В. В. Артемьев, Н. И. Безладнова, 1952; В. В. Артемьев, 1959, 1962; Л. Г. Трофимов и сорт., 1955; Р. Н. Лурье и сотр., 1956; О. В. Верзилова, 1955, 1958; Morrell, Naquet, 1956; Т. М. Мохова, 1956; Т. А. Серегина, 1956; Г. Т. Сахиулина, 1957, 1960, 1958; Yoshii, 1957; Gastaut и сотр., 1957; Morrell, 1957; А. Б. Коган, 1960; Chow и сотр., 1957; Morrell и сотр. 1957; Rougeul, 1958; Т. С. Наумова, 1958, 1960, 1961, 1962; Л. Г. Трофимов и сотр., 1958, 1959; С. М. Бабиян, 1960, Jus, Jus, 1959а, б; Т. Б. Швец, 1960, и др.) М. Н. Ливановым и его сотрудниками было выяснено, что период синхронизации активности, совпадающей с периодом генерализации временных связей, постепенно ослабляется. Обычно дело начинается с того, что во взаимодействующих анализаторах наступает большее повышение реактивности, чем в других структурах (В. Н. Думенко, 1955а, б). Во взаимодействующих анализаторах наблюдается и более выраженное нарастание возбуждения (рост ритма и амплитуд колебаний). Так, О. В. Верзилова (1955), Р. Н. Лурье и сотр. (1956), В. Н. Думенко (1955а, б, 1960а, б) и другие показали, что при упрочении оборонительных условных рефлексов у собак генерализованные по коре изменения электрической активности сменяются концентрацией процессов в корковых концах анализаторов, объединяющихся во временную связь. Это выражается в нарастании электрической активности (по частотно-амплитудным показателям) и синхронизацией ритмики потенциалов в этих зонах. В топоскопических исследованиях это выражалось в появлении фокусов активности (МВКП), преимущественно приуроченных к кортикальным уровням взаимодействующих анализаторов (М. Н. Ливанов, 1958). Эти наблюдения привели к предположению, что МВКП формируются главным образом в тех нервных структурах, которые в связи с выработкой условного рефлекса приходят в доминантное состояние. При формировании оборонительного условного рефлекса у собак наибольшее нарастание возбуждения наступает в слоях II, IV коркового конца анализатора, воспринимающего условный сигнал, и в слое V двигательного анализатора (М. Я. Рабинович, 1958, 1961). Если сигнал оборонительной реакции носит ритмический характер, эти ритмы у собак также приурочиваются к взаимодействующим анализаторам (слуховому и двигательному) (О. В. Верзилова, 1955). Наблюдение преимущественного вовлечения в реакцию корковых концов анализаторов, участвующих в формировании рефлексов, выступило и в исследованиях на людях по оборонительной (Т. А. Серегина, 1956) и речедвигательной (Т. М. Мохова, 1956) методикам. Концентрация процессов в анализаторе условного сигнала обнаружена и по показателю медленной электрической активности (Т. Б. Швец, 1960).
Описываемая стадия выработки рефлекса может быть обозначена как первая стадия концентрации в противоположность той стадии концентрации (можно назвать ее второй), которую описали М. Н. Ливанов и К. Л. Поляков (1945) и которая выражается в концентрации ритмических колебаний потенциала в сенсомоторной зоне коры мозга кролика.
Какие же этим изменениям сопутствуют сдвиги электрической активности на уровне субкортикально-стволовых структур?
Как отмечалось, в первой и во второй стадиях выработки условного рефлекса прекращение совместного действия раздражителей сопровождается остаточной активацией. Последняя имеет диффузный характер, однако по мере сочетаний все больше приурочивается к системам взаимодействующих анализаторов, что является предвестником III фазы выработки рефлекса - периода концентрации процессов в слуховом и двигательном анализаторах. Наиболее выраженные изменения электрической активности на следах сочетаний отмечаются в системе слухового анализатора. На рис. 29 представлены сдвиги ЭГ корковых и бульбарных структур собаки № 11, сопровождающие условную реакцию на II (см. рис. 29, а) и в начале III этапа (см. рис. 29, б) образования рефлекса. В ответ на 42-е применение подпорогового тона 500 гц 40 дб произошло возрастание фоновой активности, которое было в одинаковой степени выражено в кохлеарных ядрах, гигантоклеточном ядре ретикулярной формации, средней ножке мозжечка, а также в менее отчетливой форме, но все-таки выступало в корковых зонах мозга. Экзальтация активности бульбарных структур наступила с латентным периодом 150 мсек, и почти одновременно с ней тот же процесс возник в корковых зонах мозга. Болевое подкрепление вызвало усиление электрических колебаний в кохлеарных ядрах и коре сильвиевой зоны, которое сохранялось и в последействии.
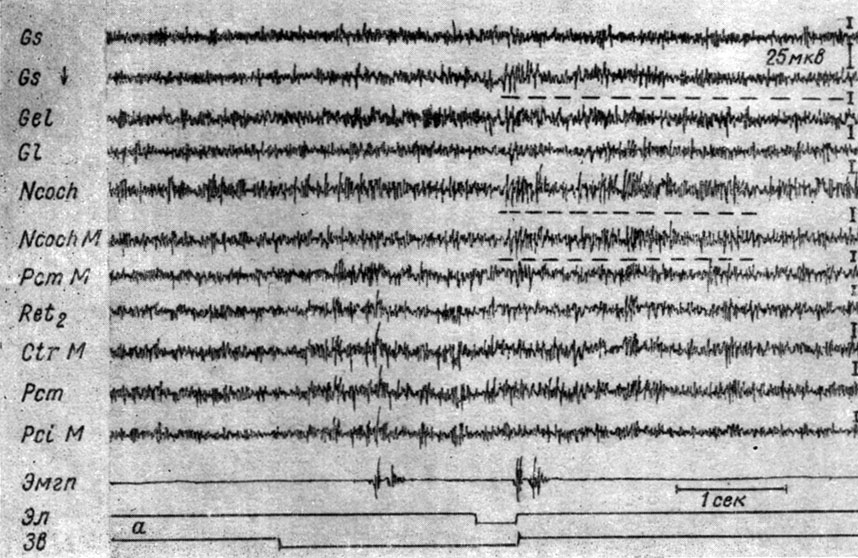
Рис. 29. Следовые изменения ЭГ (подчеркнуты пунктирной линией) в системе слухового анализатора (кохлеарных ядрах, сильвиевой извилине коры большого мозга) собаки № 11, наступающие во II (а) и в начале III (б) стадии формирования условного оборонительного рефлекса. а - 42-е и б - 53-е сочетания тона 500 гц 40 дб с электрокожным раздражением правой передней лапы (а - опыт № 36 от 4/VIII 1960 г.; б - опыт № 49 от 23/VIII 1960 г.)
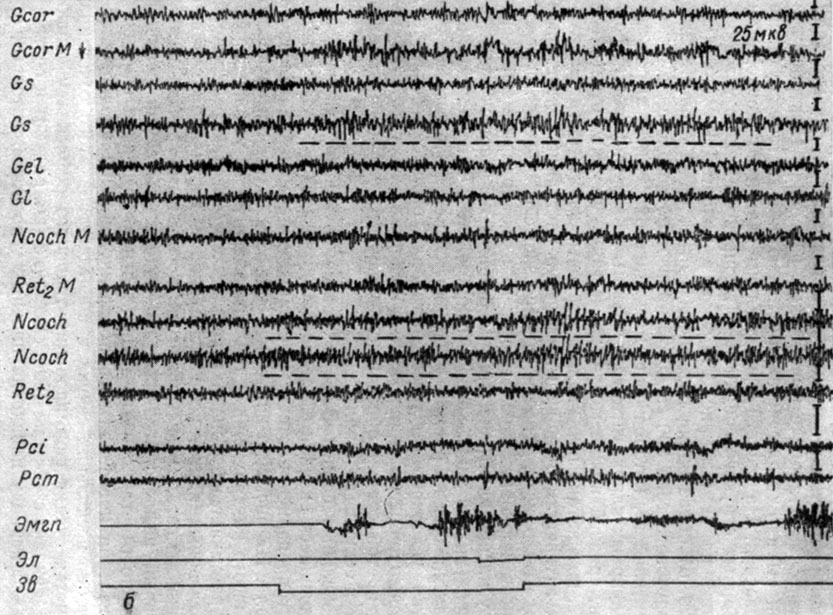
Рис. 29. Продолжение
Как следует из рис. 30, продолжительность этого этапа выработки условного рефлекса составляла около 46 сочетаний. Следовые процессы, приуроченные к системе слухового анализатора, в этой стадии образования условного рефлекса длились десятки секунд (до 1 мин).
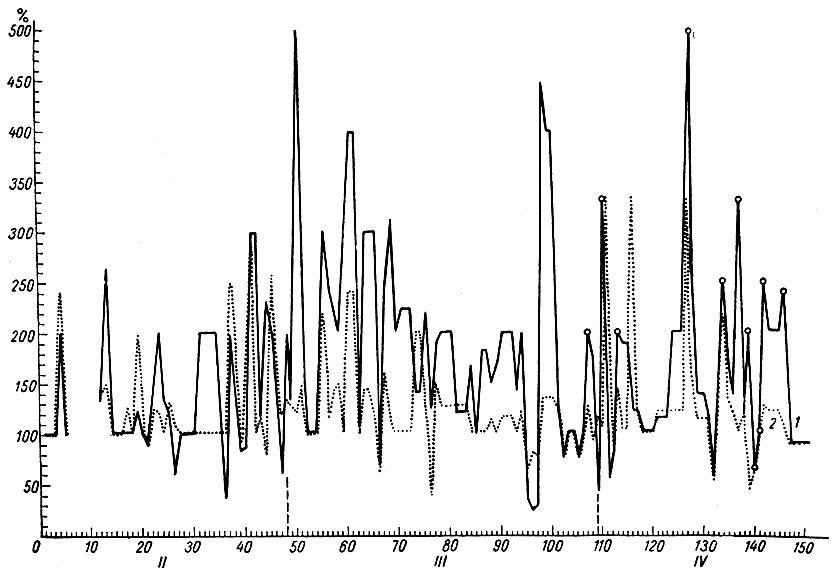
Рис. 30. Амплитудная характеристика ЭГ условной реакции при формировании оборонительного рефлекса на тон 500 гц 40 дб (собака № 11). 1 - ЭГ кохлеарного ядра; 2 - ЭГ ретикулярной формации продолговатого мозга (гигантоклеточное ядро). Кружки - амплитуда медленных колебаний. По оси абсцисс - порядковые номера сочетаний и стадии формирования рефлекса; по оси ординат - проценты по отношению к исходным величинам
Локальные сдвиги ЭЭГ в системе слухового анализатора, появлявшиеся сначала в последействии рефлексов, в III стадии регистрировались в ответ на очередное применение условного сигнала. На рис. 29, б видно, что при 53-м сочетании звукового и болевого раздражения у той же собаки № 11 условный рефлекс протекает на фоне активации электрических осцилляций в кохлеарных ядрах, коре сильвиевой и коронарной извилин большого мозга (регистрируемых погружными электродами). Условный рефлекс возникает на фоне описываемой реакции. Особенно отчетливо видна избирательная активация слухового анализатора после болевого подкрепления. Она продолжалась в течение нескольких секунд в последействии этого сочетания.
Третья стадия формирования условного рефлекса у собаки № 11 длилась с 47-го по 109-е сочетание (см. рис. 30) и соответствовала периоду появления прочных условнорефлекторных ответов, латентный период которых к концу стадии значительно снизился. Изменения активности в системе слухового анализатора были особенно четко выражены в начале третьего этапа. К концу этого периода (см. рис. 30) они значительно уменьшились.
Приведенные наблюдения свидетельствуют о том, что в III стадии образования рефлекса в системе слухового анализатора происходит избирательное нарастание уровня возбуждения, которое способствует осуществлению условного рефлекса и его последействию. Параллельно с этим возрастание возбуждения происходит и в корковом конце кожно-двигательного анализатора. Особенно четко это выступило в экспериментах с собакой № 4. На рис. 31 представлено 123-е применение порогового звукового раздражения (тон 500 гц 48 дб), ранее сочетавшееся с пороговым электрокожным раздражением у этой собаки. Видно, что вместо генерализованного усиления электрических колебаний (см. рис. 25) наступила их локальная активация в кохлеарных ядрах, в сенсомоторной зоне коры (более чем вдвое по сравнению с фоном). В остальных корковых территориях наблюдается лишь возрастание частоты изменений потенциала без существенных сдвигов в амплитудном показателе. Усиление возбуждения во взаимодействующих анализаторах появляется с латентным периодом 1/2 сек и продолжается весь период действия звука, затягиваясь в последействии на 3-5 сек, что особенно отчетливо выступает в кохлеарных ядрах. Заметного нарастания возбуждения в корковом конце слухового анализатора отметить не удается, так как запись ЭЭГ эктосильвиевой извилины произведена накладными электродами.
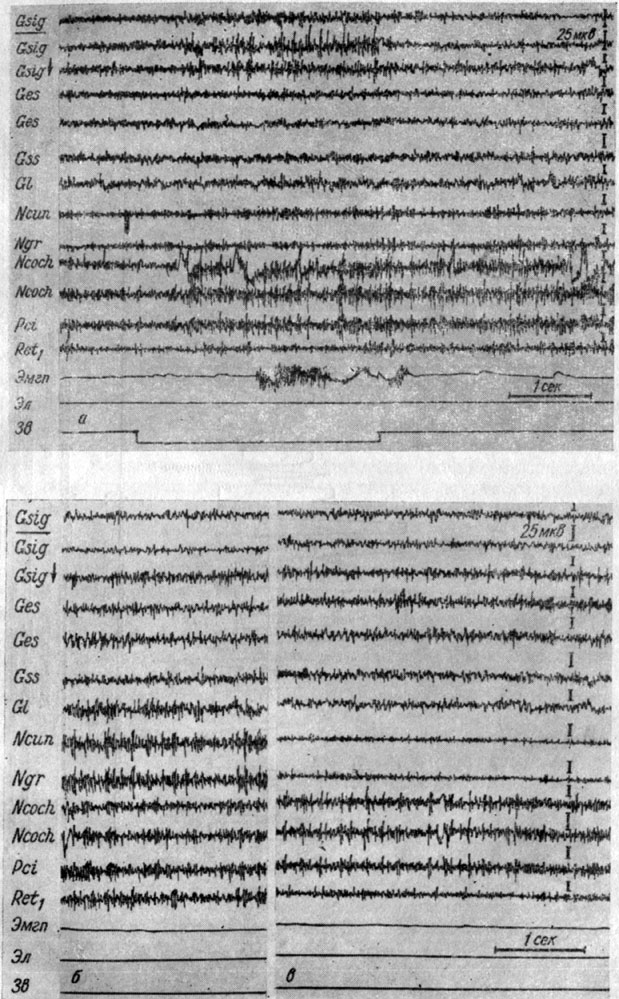
Рис. 31. Изменения ЭГ структур коры большого мозга и продолговатого мозга собаки № 4, наступающие в III стадии формирования условного оборонительного рефлекса (а), а также в межсигнальные периоды (б, в), а - 123-е применение тона 500 гц 48 дб - сигнала оборонительной реакции (опыт № 56 от 8/IV 1959 г.; б - опыт № 54 от 3/IV 1959 г.; в - опыт № 56 от 8/IV 1959 г.)
Третья фаза образования условного рефлекса на тон 500 гц 48 дб у собаки № 4 длилась с 108-го по 170-е сочетание (см. рис. 15, а, б). В этот период окончательно установились регулярные условнорефлекторные реакции (в 100% случаев) со стабильным, снижением по сравнению с первыми стадиями, латентным периодом.
Сопоставление характера условнорефлекторных изменений ЭЭГ бульбарных структур (см. рис. 15, а) и величины вызванных ответов (см. рис. 16) в III стадии формирования условного оборонительного рефлекса на включение условного сигнала (тона 500 гц 48 дб) у собаки № 4 показало, что в начале этого периода происходит значительное увеличение амплитуды вызванных потенциалов, которая к концу третьей стадии снижается. Обращает на себя внимание, что к концу III стадии обнаруживается тенденция к снижению степени активации электрических процессов в системе слухового анализатора (кохлеарных ядрах) и нарастанию ее в системе кожно-двигательного анализатора (сенсомоторной зоне коры). Это проявляется как в отношении изменений электрической активности, сопровождающих условные рефлексы (см. рис. 15, а, б), так и в отношении следовых процессов (см. рис. 17, а, б).
Сохранение следов условнорефлекторного возбуждения в III фазе формирования условного рефлекса, наблюдавшееся в системе взаимодействующих анализаторов и в первую очередь в кохлеарных ядрах и сенсомоторной зоне коры, длилось от десятков секунд до 2 мин (см. рис. 18).
На следах рефлексов в III стадии их выработки наблюдается явление избирательного активирования преимущественно кохлеарных ядер, однако его можно видеть и в других системах мозга. Вот некоторые иллюстрации сказанного. На рис. 31, б, в представлены ЭГ коры и ядер продолговатого мозга собаки № 4, записанные в разные межсигнальные периоды. В первом (см. рис. 31, б) наблюдается явление преимущественного возрастания активности ядер нежного и клиновидного канатиков, во втором (см. рис. 31, в) - активация в кохлеарных ядрах и выраженная депрессия ее в ядрах нежного и клиновидного канатиков и нижнем центральном ядре ретикулярной формации. В корковых структурах существенных различий в этих записях ЭГ отметить не удается в связи с тем, что ЭГ этих формаций регистрировалась с помощью накладных электродов.
В тех случаях, когда отведение электрических потенциалов происходило погружными электродами, следовые изменения электрической активности кортикальных компонент слухового анализатора были четко выражены.
Как следует из приведенных выше наблюдений, при осуществлении условных оборонительных рефлексов на III стадии их формирования одновременно с локальной экзальтацией электрических процессов в системе слухового и кортикальных компонент кожно-двигательного анализаторов в других структурах мозга происходит слабый диффузный эффект активации. Однако у некоторых животных в подкорково-стволовых образованиях, не принадлежащих к сигнальному анализатору, наступало падение активности, которое охватывало и стволовые звенья кожно-двигательного анализатора (в частности, ядра нежного и клиновидного канатиков). Сказанное иллюстрирует рис. 26, б. Видно, что у собаки № 3 83-е применение условного звукового сигнала сначала вызывает снижение активности в структурах продолговатого мозга и эффект десинхронизации в корковых концах слухового и двигательного анализаторов. К моменту оборонительной реакции появляется еще большее снижение активности в дугообразных волокнах, идущих от ядер нежного и клиновидного канатиков (до 5-10 мкв). В ряде отведений от кохлеарного ядра амплитуды колебаний, напротив, увеличиваются (до 30-40 мкв). Весь период действия звукового сигнала и в последействии от него в зрительной зоне наблюдаются высокоамплитудные отклонения, аналогичные тем, которые возникают при действии светового раздражения. В стадии концентрации высокоамплитудные отклонения в зрительной зоне коры также отчетливо выражены, как и во II стадии генерализации (см. рис. 26, а). В то же время объем диффузных процессов на уровне ствола по мере упрочения рефлекса несколько снизился.
Измерения величины вызванных ответов, зарегистрированных в ЭЭГ кортикальных формаций на включение условного сигнала (тона 500 гц 48 дб) у собаки № 3 (см. рис. 19), показали, что в третьей стадии формирования условного рефлекса происходит значительное увеличение амплитуды вызванных потенциалов, регистрируемых в коре эктосильвиевой извилины. К концу третьего периода выработки рефлексов величина этих ответов снижается. В период наибольшего возрастания вызванных потенциалов в коре эктосильвиевой извилины резко уменьшаются ответы в коре сигмовидной извилины, а в конце III периода формирования рефлекса, когда снижаются ответы в первичной слуховой проекционной зоне, наоборот, резко возрастают вызванные потенциалы в сенсомоторной зоне коры. Запись активности кортикальных формаций производилась накладными электродами.
Преобладание на третьей стадии образования рефлекса локальных изменений ЭГ слухового анализатора наблюдается и в его среднемозговых звеньях. Так, на рис. 32 видно, что вместо генерализованной экзальтации (см. рис. 27) при 141-м применении условного сигнала (тона 500 гц 48 дб) у собаки № 2 происходит возрастание электрической активности внутреннего коленчатого тела и в меньшей степени коры супрасильвиевой извилины. В заднем двухолмии, ретикулярной формации среднего мозга, центральном сером веществе та же тенденция выражена значительно слабее. В коре коронарной извилины нарастание частоты колебаний сопровождается уменьшением их величины. Моторная реакция (слабые токи действия) появляется на третьей секунде. Электрокожное раздражение сопровождалось эффектом генерализованной депрессии активности.
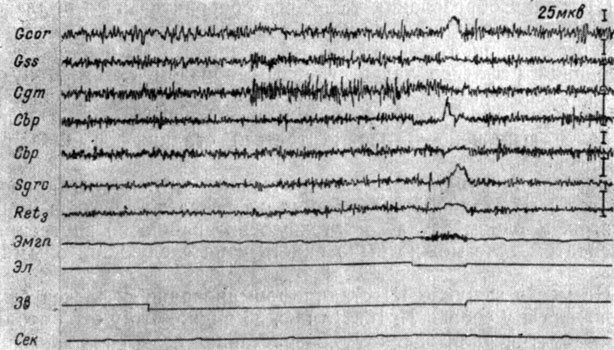
Рис. 32. Изменения ЭГ коры большого мозга и структур среднего мозга собаки № 2, наступающие в III стадии формирования оборонительного условного рефлекса. 141-е сочетание звукового сигнала (тон 500 гц 48 дб) с электрокожным раздражением (опыт № 57 от 27/XII 1958 г.)
III стадия образования условного оборонительного рефлекса у собаки № 2 длилась с 47-го по 148-е сочетание. Следовое условнорефлекторное возбуждение охватывало в III периоде формирования рефлекса также главным образом систему слухового анализатора (внутреннее коленчатое тело, в меньшей мере заднее двухолмие, кору супрасильвиевой извилины), и было наиболее выражено в начале третьей стадии формирования рефлекса.
Следовые изменения электрической активности продолжаются в III стадии формирования рефлекса до десятков минут и часов. В одном случае остаточную активацию во внутреннем коленчатом теле можно было видеть и на следующий опытный день.
Не менее выпукло III стадия формирования рефлекса была выражена и у собаки № 16. На рис. 33 видно, что у этой собаки на смену генерализованному возрастанию колебаний электрических потенциалов коры, внутреннего коленчатого тела, заднего двухолмия, красного ядра, центрального серого вещества (см. рис. 33, а), которое регистрировалось в течение 60 первых сочетаний (I электрографическая фаза выработки рефлекса у этого животного отсутствовала), приходят более локальные процессы (см. рис. 33, б). На рис. 33, б представлено 62-е воздействие звукового сигнала, подкрепляемого электрокожным раздражением. Тон сопровождается значительным ростом частоты изменений потенциалов внутреннего коленчатого тела с 45-50 до 57-62 в 1 сек и их амплитуд с 15-20 до 40-60 мкв. Это совпадает с несравненно меньшим увеличением тех же показателей в остальных мезенцефалических структурах, как-то: заднем двухолмии, ретикулярной формации, красном ядре, а также зрительной, слуховой и сенсомоторной зонах коры. Эта электрографическая картина сохраняется и в последействии (1 сек). По мере сочетаний ЭГ внутреннего коленчатого тела все более отличалась от ЭЭГ смежных областей мозга, и описываемые изменения усиливались и сохранялись по нескольку секунд в последействии сочетания. Четкой корреляции эффекта активации коленчатого тела и сдвигов ЭЭГ слуховой зоны коры здесь не удалось отметить вследствие записи ее потенциалов накладными электродами. Продолжительность III стадии формирования условного рефлекса у этой собаки - с 61-го по 165-е сочетание.
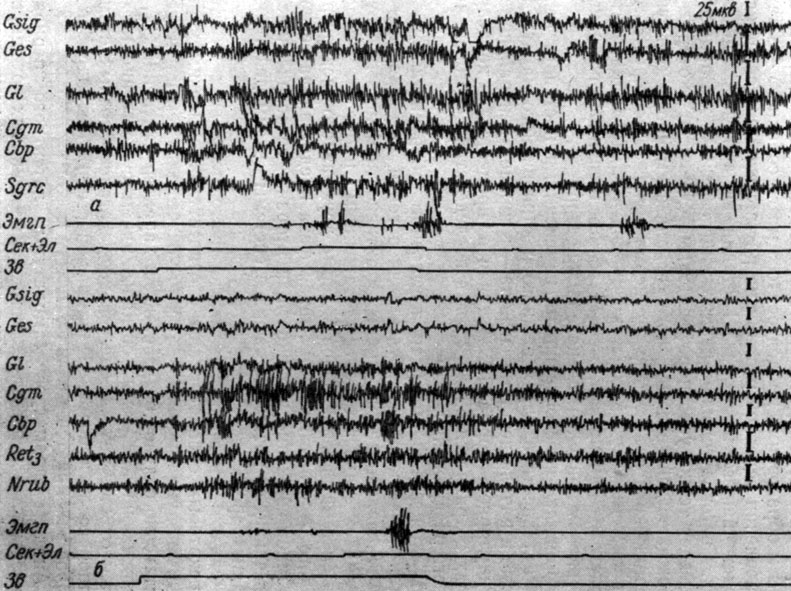
Рис. 33. Изменения ЭГ коры большого мозга и образований среднего мозга собаки № 16, наступающие во II (а) и III (б) стадиях формирования условного оборонительного рефлекса. а - 46-е, б - 62-е применение условного сигнала (тон 500 гц 48 дб). а - опыт № 20 от 20/I 1958 г.; б - опыт № 24 от 4/11 1958 г. (по Т. С. Наумовой, 1961)
Следовое возбуждение может проявляться не только сразу после прекращения сочетания стимулов, но также в периоды, значительно отставленные от условных рефлексов.
Констелляция процессов, формирующаяся в III стадии образования рефлекса, имеет доминантные свойства, она воспроизводится болевыми, световыми и другими раздражениями, а также выступает при выработке условной реакции на другие, например на световые, стимулы. На рис. 34 представлены записи ЭГ коры и образований продолговатого мозга собаки № 4 в начале становления условной реакции на ритмический световой сигнал, происходившего на фоне III стадии выработки рефлекса на звук. Световое условное раздражение с первых же применений вызывает те же условнорефлекторные сдвиги ЭГ, которые сопровождают действие звукового сигнала, а именно локальную активацию кохлеарных ядер и сенсомоторной зоны коры. Активация системы слухового и кожно-двигательного анализаторов происходит одновременно с появлением вызванных потенциалов в корковом конце зрительного анализатора.
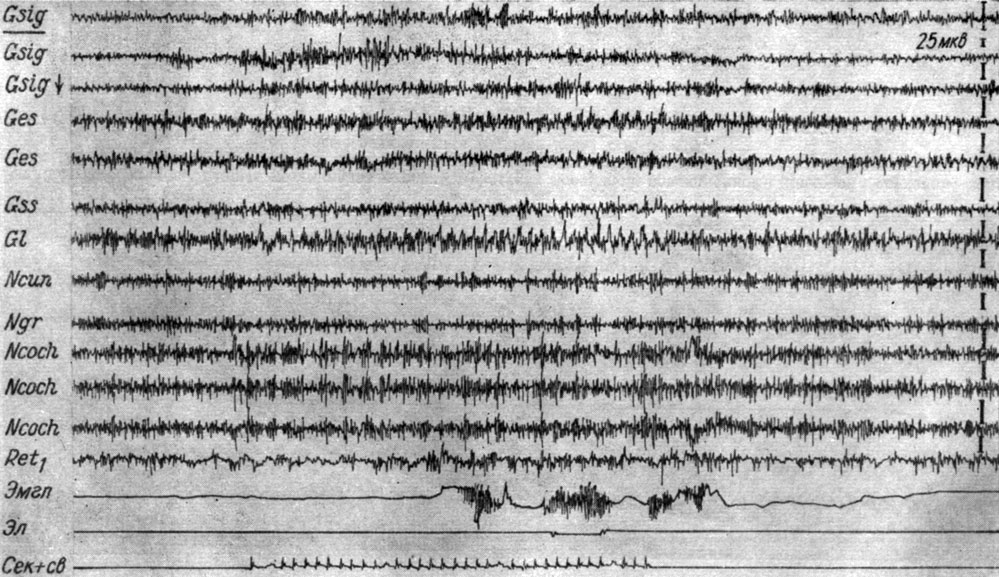
Рис. 34. Изменения ЭГ коры большого мозга и образований продолговатого мозга собаки № 4 в начале формирования условного оборонительного рефлекса (6-е сочетание) на вспышку света (0,25 лк, 10 в 1 сек). Формирование рефлекса начато на фоне III стадии выработки условного оборонительного рефлекса на звук (опыт № 59 от 11/IV 1959 г.)
Параллельно с описанными изменениями наступает депрессия активности в ядрах нежного и клиновидного канатиков, а также в начале действия сигнала - в нижнем центральном ядре ретикулярной формации. Активация процессов в кохлеарных ядрах сохраняется около 2 сек в последействии светового и болевого раздражений.
В процессе формирования условного оборонительного рефлекса на звуковые стимулы надпороговой интенсивности стадия генерализованного снижения активности мозговых структур сменялась стадией с более выраженными процессами в основных системах анализаторов в форме двухфазного электрографического ответа, в котором первая фаза представляла генерализованное снижение активности, а вторая - ее возрастание, охватывающее преимущественно системы взаимодействующих анализаторов.
Однако такое явление имело место не у всех животных. У некоторых собак сигналы с относительно высоким уровнем энергии звука (например, 100 дб) оказывали, тем не менее, недостаточно сильное воздействие, и характер изменений ЭГ, сопровождающих условные сигналы, ничем существенно не отличался от динамики процессов на действие условных стимулов подпороговой и пороговой интенсивности. Более подробно этот вопрос разбирается в главе VI.
Анализ параметров (амплитуды, латентного периода и длительности) первых трех компонент вызванных потенциалов в первичной проекционной зоне слуха, регистрируемых с помощью накладных макроэлектродов в ответ на условные ритмические (2 в 1 сек) звуковые раздражения (щелчки) у собак показал, что в III стадии формирования условного оборонительного рефлекса происходит усиление тех сдвигов, которые наблюдались в предыдущий период выработки рефлекса, а именно величина всех компонент ответа на первый щелчок (или два первых щелчка) еще более возрастает. Сказанное иллюстрируют рис. 35, а также рис. 22. Как следует из этих рисунков, в III фазе образования рефлекса происходит дальнейшее (см. рис. 22) увеличение и первой позитивной, и негативной, и второй позитивной компоненты ответа на первый щелчок (на графиках - непрерывная линия). Одновременно с увеличением амплитуды каждой компоненты вызванного потенциала на первый щелчок происходит увеличение латентного периода начала и времени до максимума позитивной фазы, а также максимума негативной фазы, которые к концу стадии достигают исходной величины ответа (см. рис. 23). Увеличение латентного периода позитивной и негативной компоненты ответа на первые щелчки происходит параллельно с увеличением их длительности (см. рис. 24).
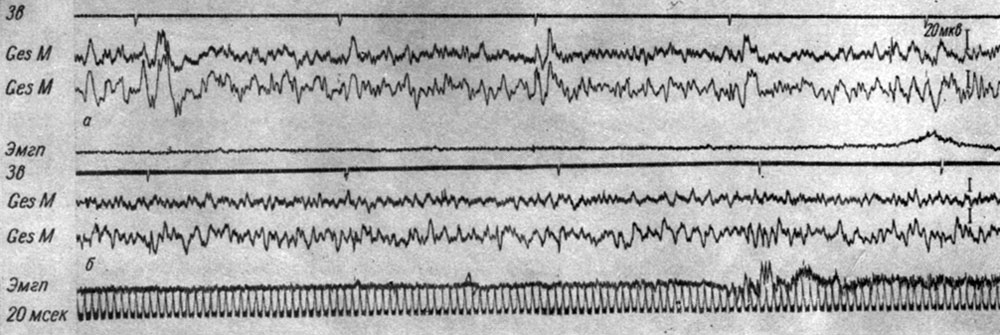
Рис. 35. Изменения вызванных потенциалов в разных участках первичной проекционной корковой слуховой зоны собаки № 19 на III (а) и IV (б) стадиях образований оборонительного условного рефлекса на ритмические звуковые раздражения (щелчки 2 в 1 сек, 56 дб). а - 27-е сочетание (опыт № 12 от 20/V 1964 г.); б - III-е сочетание (опыт № 43 от 18/VI 1964 г.) (по Т. С. Наумовой, Н. С. Поповой и Н. Н. Ульяниной 1966)
По мере приближения к моменту условной реакции амплитуды всех трех компонент первичного ответа значительно уменьшаются (рис. 35, а), нередко до полного их исчезновения (см. рис. 22, 2 и 3). Уменьшение величины каждого из трех компонент ответа к моменту движения конечности происходит параллельно с укорочением их латентного периода. Наиболее ярко это явление выступало для первых двух компонент вызванного ответа у собаки № 20. На рис. 36 представлено графическое выражение изменений латентного периода (отложены по оси ординат) вызванных потенциалов на каждый из 6 щелчков (отложены по оси абсцисс) в 8 опытах, взятых из разных периодов образования условного рефлекса у собаки № 20. Видно, что до 146-го сочетания двигательной условной реакции (отмечено стрелкой) предшествует или сопутствует период снижения латентного периода вызванных ответов.
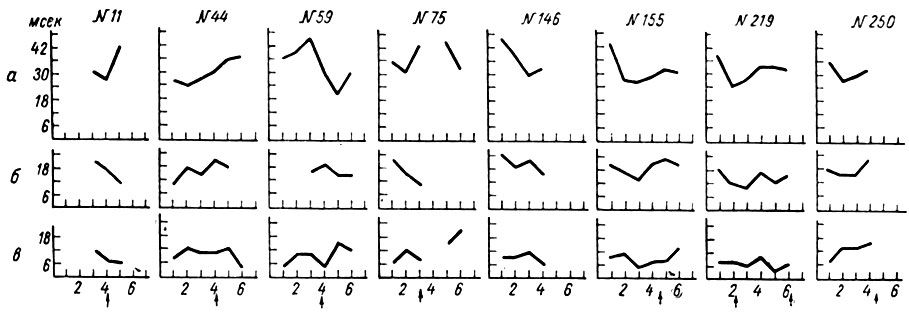
Рис. 36. Динамика латентного периода вызванных ответов на разных стадиях формирования оборонительного условного рефлекса у собаки № 20. а, б, в - то же, что на рис. 23. По абсцисс - порядковые номера щелчков; по оси ординат - миллисекунды. Сверху обозначены номера сочетаний. Стрелки - условнорефлекторные реакции (по Т. С. Наумовой и Н. С. Поповой, 1967а)
Длительность фаз вызванного ответа, так же как их латентный период и амплитуда, существенно меняются в момент, предшествующий и сопутствующий условнорефлекторной реакции конечности, а именно в первых трех стадиях формирования рефлекса условнорефлекторная реакция сопровождалась сокращением длительности ответов. Так, на рис. 37 представлены ЭЭГ коры эктосильвиевой извилины большого мозга собаки № 19, записанные в разные периоды формирования у нее условного оборонительного рефлекса. Видно, что в каждый период образования условной реакции (а, б, в) существенно различаются вызванные потенциалы, появляющиеся в ответ на первый и каждый из последующих щелчков. На рис. 37, а видно, что длительность вызванных потенциалов существенно меняется от первого к последующим щелчкам даже тогда, когда еще отсутствует условнорефлекторная реакция конечности (6-е сочетание); в III стадии образования рефлекса (рис. 37, б) длительность всех компонент вызванного потенциала на 2-й щелчок, совпадающий с условнорефлекторным двигательным ответом, значительно укорачивается по сравнению с ответом на первый щелчок. Ответы на 3-й, 4-й и 5-й щелчки по длительности приближаются к реакции на 1-й щелчок. В первых трех стадиях укорочение длительности вызванных ответов в момент, предшествующий и сопровождающий движение конечности (т. е. на 3-й и 4-й щелчки), отчетливо видно и на рис. 24.
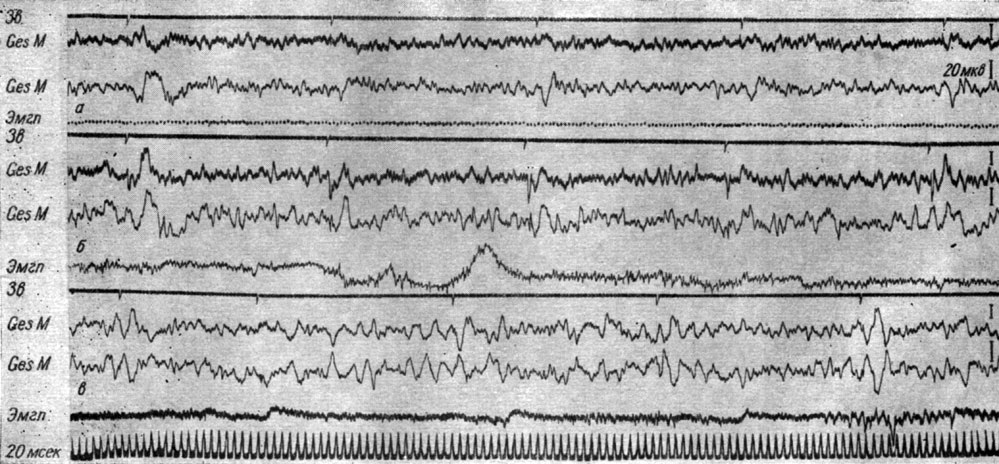
Рис. 37. Изменения вызванных потенциалов в разных участках первичной проекционной корковой слуховой зоны собаки № 19 на I (а), III (б) и IV (в) стадиях образования оборонительного условного рефлекса на ритмические звуковые раздражения (щелчки 56 дб, 2 в 1 сек). а - 6-е сочетание (опыт № 3 от 6/V 1963 г.); б - 29-е сочетание (опыт № 24 от 18/VI 1963 г); в - 162-е сочетание (опыт № 58 от 29/IX 1963 г.) (по Т. С. Наумовой и Н. С. Поповой, 1967а)
В III стадии формирования условного оборонительного рефлекса происходит стабилизация латентного периода условнорефлекторно