




II стадия формирования условного оборонительного рефлекса (второй период генерализации)
По мере сочетаний условного раздражения с безусловным реакции депрессии, сопровождающей осуществление рефлекса, начинает предшествовать вспышка активности, имеющая диффузное распространение или приуроченная к системе взаимодействующих анализаторов (слуховому и двигательному). При дальнейшей тренировке условного рефлекса экзальтация активности все более и более замещает собой реакцию угнетения, и усиление электрических колебаний наступает во всех исследованных подкорково-стволовых ядрах и территориях коры, регистрируемых с помощью погружных электродов. I и II стадии выработки рефлекса переходят друг в друга постепенно, так что, кроме "чистых" случаев, можно видеть картины, несущие в себе черты I и II этапа.
Как и в I стадии, наблюдается сходство изменений ЭГ в стволовых отделах слухового, двигательного анализаторов и ретикулярной формации каждого уровня мозга.
Фаза генерализованной экзальтации активности при выработке рефлексов в ответ на звуковые раздражения пороговой интенсивности обнаружена у всех подопытных животных. Из этих собак у 6 II стадия наступила при первых же сочетаниях раздражителей (см. табл. V).
Описание изменений ЭГ структур мозга на этой стадии выработки рефлекса мы начнем с тех животных, у которых эта реакция пришла на смену реакции генерализованной депрессии электрической активности. Так, у собаки № 4 105-е применение порогового звукового сигнала (рис. 25) сопровождается отчетливо выраженным возрастанием электрической активности в ядрах нежного и клиновидного канатиков, кохлеарных ядрах, нижнем центральном ядре ретикулярной формации, коре сигмовидной, эктосильвиевой, супрасильвиевой и латеральной извилин больших полушарий головного мозга. Возрастание активности в эктосильвиевой и супрасильвиевой извилинах выражается главным образом в повышении частоты электрических осцилляций (с 48-50 до 55-60 в 1 сек). Следует обратить внимание на значительное сходство изменений ЭГ ядер нежного и клиновидного канатиков, кохлеарных ядер и нижнего центрального ядра ретикулярной формации. Нельзя не отметить также, как близки по характеру изменения ЭЭГ сенсомоторной зоны коры, регистрируемые погружными и накладными электродами, чего не наблюдалось на предыдущей стадии выработки рефлекса (рис. 14). Направление изменений ЭЭГ в сенсомоторной зоне коры левого и правого полушарий общее, однако степень возрастания активности в левой двигательной области, по крайней мере, в 2 раза выше, чем в правой. Периоду генерализованного роста электрических осцилляций предшествует длящийся 100-150 мсек период их угнетения. Первые проявления тонической активности мышц правой передней лапы совпадают с началом генерализованного усиления колебаний. Эффект активации сохраняется несколько секунд и впоследействии раздражения. Фаза генерализованной экзальтации активности у собаки № 4 была крайне непродолжительной (105-107-е сочетание), однако ее появление отмечалось и на более ранних этапах выработки рефлекса (см. рис. 15, а, б).
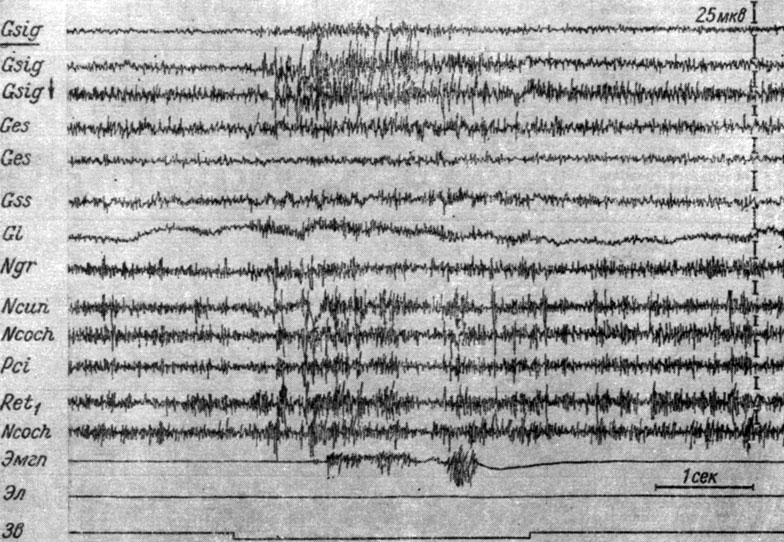
Рис. 25. Изменения ЭГ разных образований коры большого и продолговатого мозга собаки № 4, наступающие во II стадии формирования условного оборонительного рефлекса. 105-е применение тона 500 гц 48 дб (опыт № 35 от 27/II 1959 г.)
Сопоставление описываемых изменений электрической активности разных структур мозга с вызванными ответами в первичной проекционной корковой зоне слуха показало, что во второй фазе выработки рефлекса наступает возрастание величины вызванных потенциалов. Сказанное иллюстрирует рис. 16, на котором видно, что у собаки № 4 увеличение вызванных ответов в первичной слуховой зоне коры на включение условного стимула (тона 500 гц 48 дб) происходит к 107-110-му сочетаниям, когда и по показателям изменений основной электрической активности происходит переход к фазе генерализованной экзальтации электрических процессов.
Длительность следовых процессов во второй стадии выработки рефлексов не превышает нескольких секунд (см. рис. 18).
Как отмечалось, II фаза генерализации в ряде случаев наступала почти с самого начала сочетаний звукового сигнала с болевым подкреплением лапы. Так, у собаки № 3 уже 6-е применение условного звукового сигнала пороговой интенсивности (500 гц 48 дб) сопровождается (рис. 26, а) генерализованным возрастанием электрических колебаний (повышением их ритма и величины) в кохлеарных ядрах, ядрах нежного и клиновидного канатиков и нижнем центральном ядре ретикулярной формации, которому предшествует четверть секундный период их слабого снижения. Весь период действия условного сигнала в кортикальных отведениях накладными электродами регистрируется повышение ритма осцилляций при одновременном незначительном снижении их амплитуд. Различия в характере реакции корковых и стволовых структур объясняется различиями в способе регистрации их электрической активности. Интересное явление наблюдается в ЭЭГ коры латеральной извилины. В ней появляются двухфазные отклонения (в верхней части ограниченные движением пера), сходные с теми, которые возникают в указанных отделах мозга при световом раздражении.
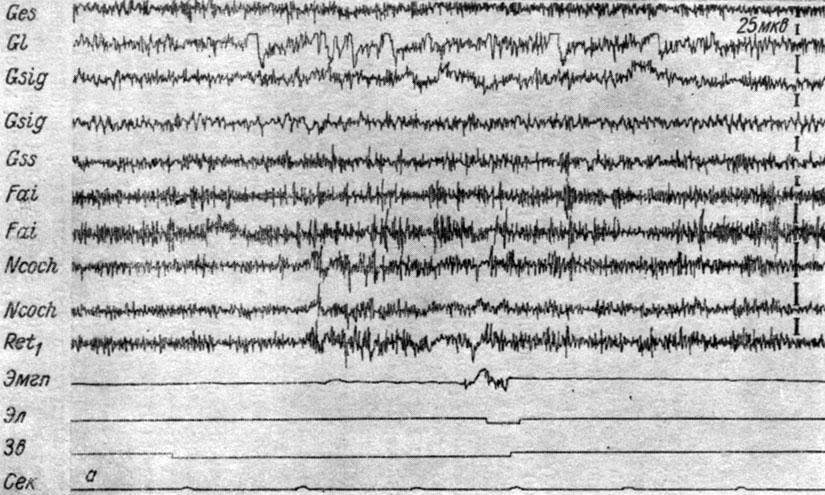
Рис. 26. Изменения ЭГ коры большого мозга и структур продолговатого мозга собаки № 3, наступающие во II (а) и III (б) стадиях формирования условного оборонительного рефлекса. а - 6-е сочетание тона 500 гц 48 дб с электрокожным раздражением правой передней лапы (опыт № 5 от 23/1 1959 г.); б - 83-е сочетание тех же раздражений (опыт № 27 от 27/II 1959 г.) (по Т. С. Наумовой, 1962в)
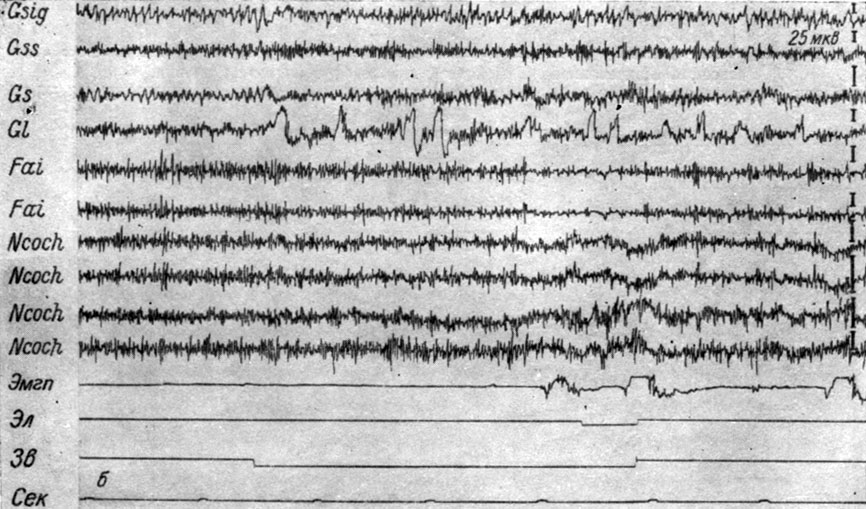
Рис. 26. Продолжение
Вызванные потенциалы в первичной проекционной зоне слуха (коре эктосильвиевой извилины), а также сенсомоторной зоне (коре сигмовидной извилины), появляющиеся на включение условного сигнала (тона 500 гц 48 дб) во II стадии выработки условного рефлекса, несколько возрастают по сравнению с ответами в I стадии (рис. 19) и у собаки № 3.
Эффект генерализованной экзальтации активности во II стадии формирования рефлекса имеет место и на других уровнях мозга. На рис. 27 представлены ЭГ корковых и мезенцефалических структур собаки № 2, зарегистрированные при 20-м сочетании условного звукового сигнала пороговой интенсивности (500 гц 48 дб) с пороговым электрокожным раздражением. Видно, что действие условного стимула вызывает возрастание электрической активности, в одинаковой степени выраженное в заднем двухолмии, внутреннем коленчатом теле, центральном сером веществе и ретикулярной формации среднего мозга. Отмечается нарастание амплитуд и частот колебаний и в коре коронарной и супрасильвиевой извилин.
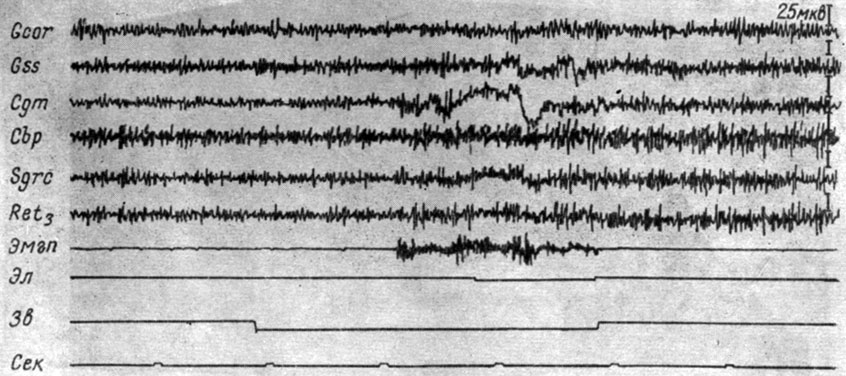
Рис 27. Изменения ЭГ коры большого мозга и структур среднего мозга собаки № 2, наступающие во II стадии образования условного оборонительного рефлекса 20-е сочетание тона 500 гц 48 дб с электрокожным раздражением правой передней лапы (опыт № 49 от 10/XII 1958 г.)
Как и на включение условных сигналов, вызванные ответы на ритмическое их действие в первичной проекционной зоне слуха испытывают отчетливые изменения по сравнению с I периодом формирования условной реакции.
Анализ параметров (амплитуды, латентного периода и длительности) их первых трех компонент в первичной проекционной зоне слуха на условные ритмические (2 в 1 сек) звуковые раздражения (щелчки) у собак показал, что во второй фазе образования условного оборонительного рефлекса происходят их значительные изменения на все 6 щелчков в серии, служащей условным сигналом. Что касается трех первых компонент ответов на щелчки в период изолированного действия раздражения, то их величина во II периоде формирования условного рефлекса значительно возрастает. Оказанное иллюстрируют рис. 21, в, а также рис. 22 (собака № 19). Как следует из рисунков, во II стадии образования рефлекса наблюдается увеличение и первой позитивной, и негативной, и второй позитивной компоненты ответа на каждый щелчок в серии, служащей сигналом условной реакции. Одновременно с ростом величины происходит возрастание длительности всех компонент ответа, которая либо достигает исходной величины, либо несколько превосходит ее (см. рис. 24, длительность негативной и второй позитивной компоненты ответа). Латентные периоды начала, время до максимума позитивной фазы, а также максимума негативной фазы таких вызванных ответов, так же как в первой стадии, сохраняются уменьшенными по сравнению с фоновыми потенциалами (см. рис. 23).
Величина и длительность трех первых фаз вызванного потенциала на щелчки, предшествующие и совпадающие с осуществлением условной двигательной реакции, испытывают дополнительные изменения. По мере приближения к моменту условной реакции амплитуда и длительность всех трех компонент первичного ответа значительно уменьшается. Более подробно эти сдвиги будут охарактеризованы при описании III стадии выработки рефлекса, где они выступают более отчетливо.
Итак, условная реакция на звуковой сигнал подпороговой и пороговой интенсивности на II этапе выработки рефлекса формируется на фоне генерализованной экзальтации (возрастания частоты и амплитуд колебаний) электрической активности, обнаруживаемой в записях погружными электродами на разных уровнях мозга: кохлеарных ядрах, ядрах нежного и клиновидного канатиков, внутреннем коленчатом теле, заднем и переднем двухолмии, ретикулярной формации ствола мозга, красном ядре, черной субстанции, центральном сером веществе, вентральном и ретикулярном ядрах таламуса, субталамическом ядре, структурах обонятельного мозга (гиппокампе, миндалевидном ядре), хвостатом ядре и, наконец, в территориях коры большого мозга.
Эта форма активности появляется сначала на следах сочетаний, а затем и в ответ на действие условного звукового сигнала. Та же картина активности может сохраняться в последействии и сопровождать межсигнальные реакции. Реакция активации выступает в субкортикальных и кортикальных системах одновременно, и лишь иногда удается заметить, что в стволово-подкорковых ядрах описываемые изменения появляются на несколько десятков миллисекунд раньше, чем в коре.
Во второй период выработки рефлекса обнаруживается четкая корреляция электрических реакций в так называемых специфических и неспецифических системах мозга каждого уровня нервной системы, как-то: кохлеарных ядрах, ядрах нежного и клиновидного канатиков, нижнем центральном, мелкоклеточном и крупноклеточном ядрах ретикулярной формации продолговатого мозга или внутреннем коленчатом теле, ядрах латеральной петли, задних и передних буграх четверохолмия, ядрах ретикулярной формации среднего мозга, красном ядре, черной субстанции, центральном сером веществе и т. п.
Условнорефлекторное движение конечности может как предшествовать, так и совпадать с началом генерализованной экзальтации активности, а также появляться на фоне развития последней. Электрокожное подкрепление обычно сопровождается усилением изменений, регистрируемых при действии условного сигнала.
Генерализованное возрастание частоты и амплитуд электрических колебаний сменяет фазу генерализованной депрессии активности (если таковая у животного имеется) лишь в случае относительно слабых звуковых сигналов (подпороговой или пороговой интенсивности). Если условные раздражения по интенсивности значительно превышают пороговые значения, а также при сильных болевых подкреплениях, стадии генерализованной экзальтации активности не проявляется, то первая электрографическая стадия непосредственно сменяется третьей.
Анализ параметров вызванных ответов в первичной проекционной зоне слуха на включение условных звуковых раздражений или серию щелчков показал, что во II стадии формирования условного оборонительного рефлекса происходит увеличение (по сравнению с изменениями на I стадии) амплитуды и длительности первых трех компонент (позитивной, негативной и второй позитивной) вызванных ответов. Латентные периоды таких вызванных ответов, так же как в первой стадии, сохраняются уменьшенными. Наиболее выражены эти сдвиги на включение условного сигнала (первый щелчок).
По мере приближения к моменту эффекторной условной реакции происходит редукция вызванных ответов при одновременном укорочении их длительности.
Второй период генерализации у разных собак имел разную продолжительность (см. табл. V). У 6 собак эффект экзальтации электрических колебаний в записях погружными электродами наблюдался с первых же сочетаний звукового и болевого раздражений, так что для этих животных эта стадия могла быть расценена как первая. Аналогичное явление имело место и для повторно вырабатываемых условных рефлексов на условные сигналы подпороговой интенсивности. Вторая стадия выработки рефлекса совпадает с периодом еще недостаточно устойчивых условнорефлекторных ответов.
В электроэнцефалоскопических исследованиях также показано, что в коре и подкорковых образованиях в процессе формирования условной связи происходит возрастание и увеличивается распространение местной высокоамплитудной активности (МВКП) (Г. И. Шульгина, 1960, 1961; И. Н. Книпст, 1961; М. Н. Ливанов, 1958).
Как показали наши наблюдения, условнорефлекторные изменения электрической активности в начале выработки оборонительного рефлекса регистрируются во всех исследованных пунктах подкорково-стволового и кортикального уровней мозга и в этот процесс в одинаковой степени включаются все уровни как "заинтересованных", так и "незаинтересованных" анализаторов, равно как и всех других формаций.
Нельзя согласиться, что широкая иррадиация процессов внутри мозга, которая наблюдалась в наших экспериментах и в опытах других исследователей, могла бы усиливаться, как это полагают Н. Иошии и сотрудники (Yoshii и сотр., 1957), наличием погружных электродов. Скорее можно разделить точку зрения Hagbarth и Kerr (1954), утверждающих, что бодрствующее состояние создает большие условия для иррадиации возбуждения.
В обеих стадиях генерализации нами обнаружена четкая корреляция процессов, наступающих в структурах каждого уровня мозга. Например, на уровне продолговатого мозга она была обнаружена в кохлеарных ядрах, верхнем оливарном комплексе ядер, трапециевидном теле, ядрах нежного и клиновидного канатиков, нижнем центральном, мелкоклеточном и крупноклеточном ядрах ретикулярной формации; на уровне среднего мозга - в ядрах латеральной петли, внутреннем коленчатом теле, заднем двухолмии; ядрах ретикулярной формации среднего мозга - в красном ядре, черной субстанции, nucl. cuneiformis, nucl. subcuneiformis, а также на уровне межуточного мозга - в вентральном и ретикулярном ядрах таламуса, субталамическом ядре в гипоталамусе и т. д.
Иначе говоря, как и при осуществлении ориентировочных рефлексов, при осуществлении условнорефлекторных реакций в стадиях генерализации имеет место значительное сходство электрических процессов в так называемых специфических и неспецифических системах ствола мозга, т. е. в анализаторных и, условно говоря, межанализаторных зонах мозга.
Как уже отмечалось во введении к этому разделу, большинство исследователей так или иначе наблюдали сходство изменений электрических процессов в различных субкортикальностволовых территориях мозга при действии условных сигналов в начальный период становления рефлекса (Sharpless, Jasper, 1956; Hernandez-Peon и сотр., 1956а, b, 1957; Galambos и сотр., 1956, 1960; Л. Г. Трофимов и сотр., 1958, 1959; Г. В. Мегун, 1958, и др.), но не акцентировали на нем внимание и не обсуждали его механизмы. Кроме того, в этих исследованиях не было отмечено, насколько включаются в диффузное проведение возбуждения и специфические системы "незаинтересованных" анализаторов.
В предыдущем разделе было высказано предположение и представлены доказательства того, что генерализованные изменения ЭЭГ связаны с диффузным распространением возбуждения в восходящем направлении по всему стволу мозга, т. е. не только по неспецифическим системам (как это принято считать), но также по образованиям, которые к этим системам не причисляются, и, в частности, специфическим ядрам ствола мозга, принадлежащим к "незаинтересованным" анализаторам. Все сказанное в отношении генерализованных изменений ЭЭГ, наступающих в ответ на действие безусловных раздражений, справедливо и для действия условных сигналов на первых стадиях формирования рефлекса. Если справедливо заключение, что диффузная афферентация мозга опосредуется не только неспецифическими, но и всеми другими, в том числе специфическими, системами, то можно предположить, что взаимодействие процессов осуществляется на уровне ствола не только в ретикулярной формации.
Обнаруженное нами явление конвергенции импульсов разных модальностей на уровне первичного переключательного реле кожно-двигательного анализатора - ядре клиновидного канатика - позволяет по-новому подойти к решению вопроса о встрече двух взаимодействующих возбуждений при образовании временной связи. Эти опыты, показавшие возможность конвергенции импульсов на нейронах первичного реле кожно-двигательного анализатора - ядра клиновидного канатика, свидетельствуют о том, что конвергенция импульсов, являющаяся одной из сторон взаимодействия процессов возбуждения с разных анализаторов, осуществляется и на уровне стволовых отделов специфических систем. На этом основании можно полагать, что широкая иррадиация процесса условнорефлекторного возбуждения по стволово-подкорковым и кортикальным формациям в стадии генерализации определяется взаимодействием анализаторов на уровне каждого мозгового образования и в том числе ядрах специфических систем. Условнорефлекторные изменения электрических потенциалов, по-видимому, являются результатом многократной встречи возбуждений, вызванных с сигнального и безусловного анализаторов, на уровне каждого данного образования. Этот вывод можно подкрепить наблюдениями, в которых показан факт конвергенции, т. е. встречи, импульсов разного происхождения на нейронах ретикулярной формации ствола (Amassian, De Vito, 1954; Scheibel и сотр., 1955, и др.), нейронах ядер диффузной проекционной системы таламуса, гипоталамуса, субталамуса (Gellhorn, Ballin, 1946, и др.), нейронах ядер экстрапирамидной системы (Kruger, Albe-Fessard, 1959, и др.), нейронах структур обонятельного мозга (Green, Arduini, 1954, и др.), нейронах коры (Gellhorn и сотр., 1954; Р. Юнг, 1958; Li, 1958; П. Бюзер, М. Эмбер, 1961, и др.) и, наконец, нейронах переключательных реле специфических систем анализаторов.
Так как, по-видимому, неспецифические афференты пронизывают весь ствол мозга, в том числе и основные афферентные пути в коре, в каждой структуре может осуществляться взаимовлияние процессов, вызываемых с самых различных рецепторов. Иными словами, есть все основания считать, что имеются и структурные и функциональные возможности для встречи возбуждений разного происхождения не только в коре, не только в ретикулярной формации и других ядрах неспецифических систем мозга, но практически во всех образованиях и в том числе в подкорковых ядрах взаимодействующих анализаторов. Такое "схождение" афферентаций является общим явлением в физиологии нервных образований, и речь может идти, по-видимому, не столько о качественных, сколько о количественных различиях между теми или иными формациями мозга.
Разумеется конвергенция импульсов не является единственной формой взаимодействия процессов возбуждения, вызванных с разных анализаторов, однако она свидетельствует о возможности встречи возбуждений разного происхождения на уровне элементов того или иного образования. Что касается взаимодействия неимпульсных форм активности, то данные о них известны лишь в отношении кортикальных уровней мозга (Arduini и сотр., 1957; Goldring, O'Leary, 1957; Ардуини, 1958; Н. А. Аладжалова, 1958).
Многочисленные экспериментальные факты свидетельствуют о том, что взаимодействие процессов является результатом как конвергенции импульсов на отдельных нейронах (А. Гасто, А. Роже, 1958; Fessard, 1959; А. Фессар, 1958; Hernandez-Peon, 1957; Р. Эрнандес-Пеон, 1958, и др.), так и следствием схождения электротонических влияний, выражающихся в сдвигах постоянного потенциала больших агрегатов клеточных элементов мозга (В. С. Русинов, 1953, и др.).
Генерализованные изменения ЭГ (депрессия или экзальтация) в стволово-подкорковых и кортикальных структурах наступают при действии условных раздражений сначала в нижних отделах ствола и распространяются по нему в направлении к коре со скоростью, колеблющейся в пределах десятков сантиметров в 1 сек. Так как условнорефлекторные изменения электрической активности начинаются, по нашим данным, со структур продолговатого мозга, а лишь затем (через 30-500 мсек) появляются в структурах среднего, межуточного и переднего мозга, то можно думать, что процесс возбуждения этого рода распространяется в восходящем направлении и обусловлен проведением какого-то влияния, охватывающего постепенно снизу вверх все структуры мозга. Генерализованное распространение возбуждения, согласно этим данным, происходит со скоростью, значительно различающейся для условных реакций на разных этапах их становления от 8-10 см в 1 сек до 2 м в 1 сек. С аналогичной скоростью (25-30 см в 1 сек) распространяется реакция десинхронизации в коре головного мозга человека (В. С. Русинов, 1960). В. С. Русинов рассматривает эту реакцию как выражение процесса иррадиации возбуждения.
Так как, по нашим наблюдениям, распространение диффузной волны возбуждения по мере выработки условного оборонительного рефлекса на звук охватывает мозг все в более короткие интервалы времени, это наводит на мысль о связи этого явления с образованием рефлекса. По-видимому, процессы взаимодействия афферентаций, вызываемый с анализаторов, вступающих во временную связь, осуществляются сначала на нижних уровнях нервной системы, а затем и на более высоких ее уровнях. С взаимодействием афферентаций на уровне последних связано осуществление условного рефлекса.
Что касается природы генерализованных изменений электрической активности, которые постепенно распространяются вверх по стволовым и подкорковым формациям мозга к коре, можно предположить, что они обязаны своим происхождением электротоническим сдвигам потенциала, представляющим, по мнению В. С. Русинова (1953, 1958), форму связи между нейронами, играющую главную роль при установлении временной связи. Это заключение делается на том основании, что, как полагают (Adrian, 1931; Barron, Matthews, 1938; В. С. Русинов, 1960; Caspers, 1959; Е. Н. Соколов, 1962, и др.), сдвиги постоянного потенциала лежат в основе модуляции ЭЭГ. Приведенные наблюдения подтверждают мысль В. С. Русинова, что главную роль в замыкании временных связей играют длительные электротонические процессы (или сдвиги постоянного потенциала), обусловливающие изменения фоновой электрической активности. Экспериментальное обоснование этот взгляд получил в работах В. С. Русинова и его сотрудников (Л. А. Новикова и сотр., 1952; Т. С. Наумова, 1956а, б, 1957; А. А. Соколова, 1958, 1959; Г. Д. Кузнецова и сотр., 1959; Т. Б. Швец, 1958, 1960, 1962; Р. А. Павлыгина, 1960, 1962, и др.) а также Р. С. Мнухиной (1960, 1961), Г. И. Шульгиной (1960, 1961) и др. Мысль о неимпульсной природе иррадиации возбуждения поддерживается Д. С. Воронцовым (1960), Morrell (1961) и др. Вместе с тем, генетическая взаимосвязь электротонической и импульсной активности в вопросах механизмов замыкания изучена пока еще недостаточно, и в дальнейшем она, видимо, должна получить более полное освещение.
Естественно, встает вопрос о том, зависят ли условнорефлекторные изменения ЭЭГ в каждом образовании мозга только от того, что на их уровне осуществляется взаимодействие процессов, вызванных с разных анализаторов, или еще и от того, что эти образования испытывают влияние со стороны других структур - главных участников замыкания. По-видимому, для формирования генерализованных изменений ЭЭГ немаловажное значение должно иметь и то взаимовлияние, которое осуществляется на разных уровнях мозга между специфическими и неспецифическими системами, между корковыми и подкорковыми уровнями мозга и т. д. (см. обзоры Rossi и Zanchetti, 1957; Т. С. Наумова, 1963). Очевидно, взаимовлияние структур представляет из себя второй из возможных механизмов возникновения генерализованных изменений электрической активности. Однако этот механизм вступает в действие лишь после того, как осуществляется встреча взаимодействующих возбуждений на уровне каждой структуры мозга. С другой стороны, генерализованные сдвиги ЭГ происходят вследствие того, что они выражают эффекторные процессы, реализация которых связана с деятельностью многих структур мозга.
Генерализованные изменения электрической активности поддерживаются и той "обратной" афферентацией (П. К. Анохин, 1949), которая сопутствует осуществлению любого рефлекторного акта и также диффузно охватывает мозг. Об этом свидетельствуют наблюдавшиеся в наших опытах (см. рис. 26) локальные высокоамплитудные колебания электрической активности типа вызванных ответов в зрительной зоне коры при осуществлении условных оборонительных рефлексов на звуковые раздражения. Очевидно, возникновение в зрительной зоне коры колебаний потенциалов, аналогичных ответам на световые вспышки, свидетельствует о приходе сюда возбуждения, возникающего в зрительном анализаторе. По-видимому, это происходит по следующим причинам. Безусловные и условные оборонительные рефлексы сопровождаются перераспределением тонуса мышц конечностей и тела, а затем появлением локальной двигательной реакции (П. К. Анохин, 1949; А. И. Шумилина, 1945, 1949а, б, в; М. Ф. Корякин, 1958). Одновременно с этим меняется положение головы животного и, как следствие этого, меняется освещенность его глаз, поэтому при действии условного звукового сигнала в зрительной коре возникают многократные колебания потенциалов типа вызванных ответов. Нельзя не отметить, что в других зонах мозга при осуществлении безусловных и условных оборонительных рефлексов наступает отчетливо выраженный эффект десинхронизации активности, свидетельствующий о том, что возбуждение достигает и других территорий мозга.
Таким образом, происходящие сдвиги потенциалов (типа вызванных ответов или эффект десинхронизации) в "незаинтересованных" территориях коры головного мозга свидетельствуют о том, что в смежных анализаторах не только повышается возбудимость (Е. Н. Соколов, 1958), но, как следствие этого, происходит включение их в деятельное состояние, т. е. в проведение потока, "обратной" афферентации, осуществляющейся, таким образом, не только с соматической системы (И. М. Сеченов, 1863; Н. А. Бернштейн, 1947; П. К. Анохин, 1949, 1958а), но также с других анализаторов (П. К. Анохин, 1958а). В свою очередь эти влияния повышают восприимчивость анализаторов, вступающих во временную связь, что сенсибилизирует их замыкание и корректирует их реакцию на сигналы внешней среды.
Итак, четвертой причиной появления широко иррадиированного возбуждения может быть механизм "обратной" афферентации, электрографическим выражением которого является как усиление реакции десинхронизации, так и появление вызванных потенциалов в первичных проекционных зонах "незаинтересованных" анализаторов в ответ на действие условных сигналов.
Как показали многочисленные опыты, по мере выработки и упрочения условной оборонительной реакции генерализованные изменения электрической активности начинают замещаться более локальными, очаговыми процессами. Однако таким локальным реакциям на всех стадиях формирования рефлекса (это будет проиллюстрировано в следующих главах) сопутствуют общие сдвиги, несколько более выраженные в первый момент действия сигнала условной реакции.
То, что генерализованные сдвиги ЭЭГ в стадии достаточно упроченных рефлексов не удается обнаружить при отведениях ЭЭГ от поверхности головы человека (Г. В. Гершуни, 1949; Е. Н. Соколов, 1955; Л. Г. Воронин, Е. Н. Соколов, 1955) или кролика (М. Н. Ливанов, 1960), объясняется особенностями записей накладными электродами, которые, как показали наблюдения Д. С. Воронцова (1960), И. С. Бериташвили (1960), А. И. Ройтбака (1958), А. Б. Когана (1960) и мн. др., богаты медленными колебаниями, в которых слабо отражаются диффузные быстрые процессы глубоких слоев коры (М. Я. Рабинович, 1961; Г. Джаспер и сотр., 1958; Ф. Моррелл, 1958б; X. Т. Чанг, 1958, и др.).
Диффузные процессы, сохраняющиеся, по нашим наблюдениям, даже в стадии вполне упроченных у