




Кора мозга
Архипалий и неопалий (старый плащ и новый плащ). Мозговая кора, взятая в своей совокупности, обычно носит название pallium - плаща. Та часть pallii, которая связана с обонятельным аппаратом, развилась в эволюции позвоночных гораздо раньше, чем необонятельная часть pallii, и поэтому носит название - archipallium (старый плащ). Вся же необонятельная область мозговой коры носит название neopallium (новый плащ).
Archipallium достигает максимального развития у низших млекопитающих, особенно у сумчатых (кенгуру, опоссум), и состоит из hippocampus и lobus pyriformis (грушевидная доля). У человека на поверхности мозговой коры архипалий занимает очень незначительную область. Большая часть его скрыта в глубине вследствие образования вдавления (складки) вдоль заднего края неопалия. Самый передний отдел извилины морского коня и слабо выраженная stria lateralis обонятельной ножки - вот все, что осталось в человеческом мозгу от сравнительно обширной lobus pyriformis многих низших млекопитающих. Сама извилина морского коня (gyrus hippocampi), которая лежит на наружной стороне lissurae dentitae, хотя и продолжается непосредственно в грушевидную область, не относится к обонятельному мозгу (rhinencephalon), - она принадлежит к неопалию.
Rhinencephalon - наиболее архаическая часть мозговых полушарий - в мозгу низших позвоночных (рыбы, амфибии, рептилии) составляет наибольшую часть их полушарий. В мозгу человека rhinencephalon представлен: bulbus olfactorius, tractus olfactorius и его корешки, переднее продырявленное пространство, uncus, gyrus subcallosus, septum lucidum, hippocampus, fornix, gyrus dentatus и gyrus supracallosus.
Слабая бороздка, которая отделяет uncus от полюса височной доли incisura temporalis (височная вырезка), является одной из наиболее древних борозд. Она представляет собой пограничную борозду между архипалием и неопалием (sulcus ecto-rhinalis).
За исключением архипалия (обонятельного мозга - rhinencephalon) и полосатого тела (corpus striatum), вся остальная часть полушарий представляет собой неопалий. Он охватывает не только область извилин, но и связанное с ними белое вещество. Наибольшего развития неопалий достигает в мозгу человека. В своей филогенетической эволюции архипалий и неопалий развиваются более или менее независимо друг от друга. В одних случаях архипалий атрофируется, а неопалий достигает высокой степени развития (человек, обезьяны), в других случаях происходит обратная картина: архипалий образует значительную часть полушарий, а неопалий сравнительно малую часть (рис. 239, 240, 241, 242, 243).
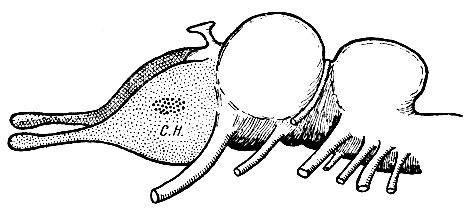
Рис. 239. Схема примитивного мозга позвоночного животного. Область коры, связанная с не обонятельными впечатлениями (обозначена более грубыми точками); область коры, связанная с обонятельными впечатлениями (обозначена мелкими точками)
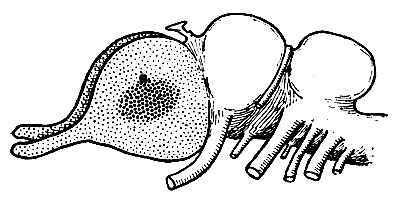
Рис. 240. Схема мозга в дальнейшей стадии эволюции. Необонятельная кора (более грубые точки) занимает на поверхности полушария более обширную область, чем в предыдущей стадии
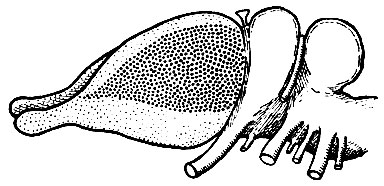
Рис. 241. Схема примитивного мозга млекопитающего, показывающая дальнейшее развитие неопалия (область, заштрихованная крупными точками)
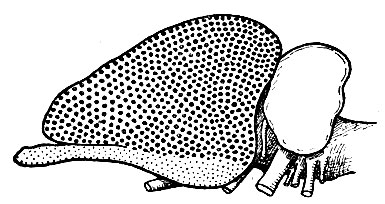
Рис. 242. Схема типичного мозга млекопитающего, показывающая, что неопалий (область, заштрихованная крупными точками) распространился за счет архипалия (область, заштрихованная мелкими точками) и занимает теперь большую часть полушария
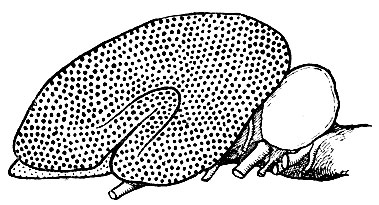
Рис. 243. Схема законченного мозга млекопитающего. Неопалий увеличился; на нем стали появляться борозды. Архипалий (область, заштрихованная мелкими точками, занимает лишь незначительный, краевой отдел полушария)
Надо думать, говорит Wood Jones, что мозг первичного млекопитающего состоял из ряда нервных узлов, причем каждый узел служил или для восприятия определенного чувствования, или для выполнения определенного действия. В таком мозгу впечатления от определенных органов чувств шли по определенным путям к своим определенным анатомический станциям, а эти узловые станции находились во взаимной связи друг с другом. В придачу к вышеописанному аппарату здесь существовал вырост с каждой стороны переднего мозга - небольшое мозговое полушарие, - предшественник обширной мозговой коры высших типов. В этом первичном мозговом полушарии впечатления, пришедшие по различным путям, соединялись между собой и накоплялись. Здесь возник процесс сознания, суждения и памяти. Связи отдельные стволовых) центров с корой полушарий устанавливались постепенно и в определенном порядке. Первым органом, установившим связь с корой, был орган обоняния. У предшественников млекопитающих мозговые полушария по функции были по преимуществу обонятельными, и даже когда возникло истинное млекопитающее и все другие чувствования получили должное представительство в мозговой коре (неопалии), поведение животного все еще находилось в гораздо большей степени под влиянием обонятельных впечатлений, чем каких-либо других чувств. Это зависело, говорит Wood Jones, не только от того факта, что чувство обоняния уже имело в своем ведении выработанный аппарат в мозговых полушариях задолго до вступления в полушария соответствующего представительства других органов чувств, но также и от того, что для маленьких, вечно тычащих в землю своим носом животных, какими были первичные млекопитающие, руководство обонятельными впечатлениями как для отыскивания пищи, так и для распознавания друзей и врагов, оказывало гораздо больше услуг, чем все другие чувствования.
Таким образом, духовная жизнь первобытного существа протекала по преимуществу в атмосфере запахов, и о каждом объекте внешнего мира составлялось суждение прежде всего и главным образом на основании его запаха. Чувства прикосновения, зрения, слуха являлись лишь вспомогательными при господствующем влиянии обоняния.
Раз такое животное покидало твердую почву и переходило к древесному образу жизни, все вышеприведенное должно было измениться, ибо вдали от земли руководство чувством обоняния imoro теряет в своей полезности. Обонятельные части мозга и самый периферический чувствующий обонятельный аппарат у живущих на деревьях животных заметно атрофированы; обонятельные впечатления играют лишь малую роль в жизни приматов. У человека обонятельные впечатления играют еще меньшую роль.
Wood Jones в своей работе "Arboreal man" (древесный человек) очень картинно описывает последовательное возникновение у млекопитающих чувствительно-двигательных центров коры, степени их последующего развития и причин их топографо-анатомических взаимоотношений. Из работы Wood Jones я и заимствую нижеприведенные соображения.
Примитивное млекопитающее прежде всего познавало мир, знакомясь с запахом предметов, затем осязанием, - прикасаясь к предметам концом своего рыла, тыча всюду свое рыло. Впечатления, получаемые от органа обоняния, дополняются, таким образом, впечатлениями, получаемыми при помощи органа осязания. Эти осязательные впечатления, получаемые рылом, скоро находят путь к коре мозга. Длинное вытянутое рыло является типичным для всех первичных млекопитающих: однопроходных, сумчатых и даже плацентарных. С освобождением передней конечности, с развитием захватывающей способности ручной кисти замечается постепенное отступление удлиненного рыла кзади. Захватывающая кисть заступает место захватывающих челюстей; мало того, она становится органом осязательным, органом испытующим; она не только постепенно берет на себя значительную долю работы челюстей, но и осязательную функцию рыла. Главный осязательный орган животного переносится таким образом с одно и части тела на другую. Свободная чувствующая рука идет теперь впереди животного на его жизненном пути вместо рыла. В своей древесной жизни животное раньше исследует предмет осязанием своих рук, а уже затем, если пожелает, может обследовать его при помощи обоняния. Свободная рука открывает новые пути для обследования мира в придачу к старым путям - обонятельному и осязательному при помощи рыла. Увеличивается число объектов, доступных исследованию, увеличивается полнота исследования, - рукой мы можем определить очертание предмета, строение его поверхности, объем, температуру, твердость, мягкости; вес. Сорванный и поднесенный к глазам предмет повышает нашу зрительную оценку. Осязательное чувство руки помогает нам проверять, и связывать впечатления, получаемые при помощи других органов чувств.
Как было указано выше, первые ощущения, достигшие коры, были обонятельные; вслед за ними достигли коры осязательные ощущения, идущие от рыла, и поместились в коре в непосредственном соседстве с обонятельными. Весьма вероятно, что и вкусовые ощущения из полости рта также поместились по соседству с обонятельными. Так как в стволовой части мозга двигательные центры расположены по соседству с соответствующими чувствующими, то весьма вероятно, что двигательная область коры ассоциированная с движениями рыла, будет развиваться по соседству с соответствующими чувствующими областями. С появлением руки как чувствующего органа к вышеописанным чувствительно-двигательным областям коры должна была присоединиться новая область - чувствительно-двигательная область руки, расположенная по соседству с чувствительно-двигательной областью рыла. Для древесного животного с уменьшением роли чувства обоняния слуховые и световые ощущения приобретают большое значение (рис. 244-248).
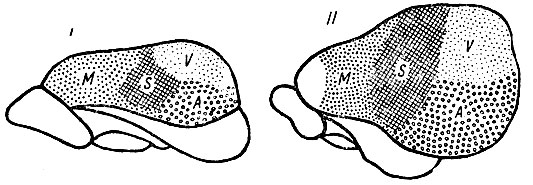
Рис. 244. Слева мозговое полушарие прыгунчика (macroscelides), справа - мозговое полушарие тупаий (tupaia). И то, и другое животное принадлежат к насекомоядным (insectivora). Корковые области показаны, как они были определены проф. Elliot Smith. M - двигательная область; S - общая чувствительность; V - зрительная область; A - слуховая область. Белое поле, расположенное на обоих рисунках в нижнем отделе полушария, обозначает обонятельную область. Белое поле на рисунке II, расположенное впереди двигательной коры, обозначает префронтальную область
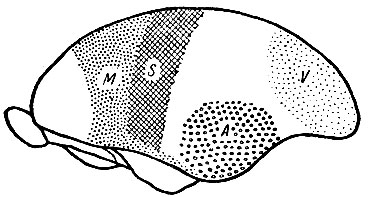
Рис. 245. Мозговое полушарие долгопята (Tarsius). Корковые области показаны, как они были определены проф. Elliot Smith. Сравнивая этот рисунок с предыдущим, мы отмечаем расширение префронтальной области и развитие ассоциационных областей между полями - зрительным, слуховым и полем общей чувствительности. Обозначения те же, что и на предыдущем рисунке
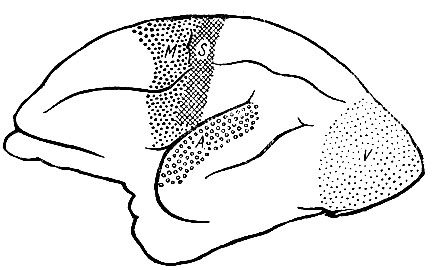
Рис. 246. Мозговое полушарие лемура. Корковые области показаны, как они были определены Brodmann. Имеется значительное расширение ассоциационных областей по сравнению с тем, что мы отмечали у долгопята
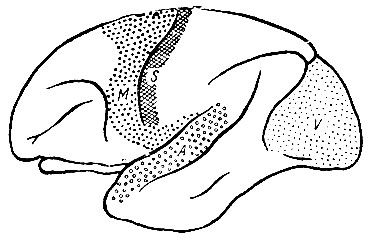
Рис. 247. Мозговое полушарие обезьяны макака (macacus). Корковые области показаны, как они были определены Brodmann. Дальнейшее развитие стадии, представленной лемуром. Особенно заметно увеличение префронтальной области
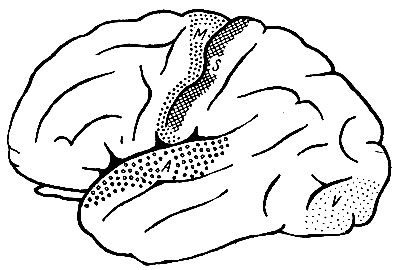
Рис. 248. Корковые области мозгового полушария человека. Имеется усиленное развитие ассоциационных областей. (Wood Jones. Сделаны небольшие изменения)
Слуховая область впервые появляется в задне-нижнем отделе мозговых полушарий; зрительная область лежит непосредственно над нею, а осязательно-двигательная кора - кпереди от обоих. Когда мозговые полушария в связи с увеличением области представлений увеличиваются, расширение вышепоименованных областей не идет равномерно. Часть коры, прилежащая сбоку к серым узлам corporis striati, не участвует в этом разрастании и остается более или менее фиксированной (insula Reilii), тогда как участки, расположенные вокруг нее, разрастаются. При этом росте слуховая область коры, отталкиваемая сверху расширяющейся зрительной областью, будет распространяться по направлению книзу и кпереди. В конце концов, она становится отделенной от зрительной области так называемой промежуточной областью коры. Разрастающийся промежуточный корковый слой отталкивает к задней границе полушарий зрительную область и отделяет ее целым участком от осязательно-двигательной области. На переднем конце полушарий развивается новая префронтальная область. Во вновь образованных при разрастании коры промежуточных областях поместились области ассоциаций: здесь сливаются и координируются впечатления, находящиеся в пограничных с ними чувствующих областях. Эти ассоциационные участки между слуховым и зрительным полями, между зрительным и осязательно-двигательным, расширившись у древесных приматов, становятся отличительной чертой человеческого мозга.
Животное без корковой чувствительно-двигательной области совершает все его действия при отсутствии какого-либо картинного сознания об этих действиях. Животное с чувствительно-двигательной корковой областью, наоборот, совершает действия, о которых оно имеет определенное картинное представлении. Оно знает, что оно делает; помнит, что оно делало и может представить, что оно будет делать.
Brodmann, Economo и др. делят толщу коры неопалия у человека на шесть слоев (пластин) (рис. 249): 1) зональная пластина, состоящая из тангенциальных волокон; 2) пластина наружных зерен или малых пирамидальных клеток; 3) пирамидальная пластина или слой средних и больших пирамидальных клеток; 4) пластина внутренних зерен, содержащая покрытые миэлином волокна наружной линии Baillarger; 5) ганглионарная пластина, содержащая в двигательной области гигантские пирамидальные клетки Betz, а в большинстве других областей - покрытые миэлином волокна внутренней линии Baillarger; 6) мультиформная пластина или слой полиморфных клеток. Bolton соединил 2-й и 3-й слои Brodmami в один слой и получил таким образом у человека пять слоев коры неопалия: 1) наружная пластина волокон (нервные фибриллы); 2) наружная клеточная пластина (пирамидальные клетки); 3) средняя клеточная пластина (зерновидные клетки); 4) внутренняя пластина волокон (нервные аксоны); 5) внутренняя клеточная пластина (полиморфные клетки). Watson объединяет вместе все слои, лежащие над слоем зерен, и называет эти объединенные слои супрагранулярной (надзерновидной) корой; слой зерен называет гранулярной (зерновидной) корой, а слои, расположенные ниже слоя зерен, называет инфрагранулярной (подзерновидной) корой.
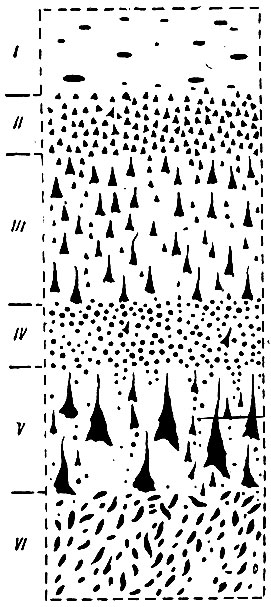
Рис. 249. (Объяснение в тексте)
И онто- и филогенетически различные слои мозговой неопалиальной коры появляются в следующем порядке: первой в процессе развития появляется инфрагранулярная кора; очень быстро она достигает своей зрелости: представляет очень малые различия в своей толщине у высших и низших млекопитающих. Гранулярный, слой появляется вскоре после инфрагранулярного. Последним появляется супрагранулярный слой. Своей полной зрелости он достигает позднее других слоев. Он слабо выражен в неопалиальной коре низших млекопитающих; его толщина значительно увеличивается у высших млекопитающих и достигает своего наибольшего развития у человека.
Таким образом, неопалиальную кору низших млекопитающих, где над зерновидный слой еще недостаточно развит, можно рассматривать в общем как бы состоящей из трех слоев: 1) из слоя зерен, 2) из расположенного под ним слоя покрытых миэлином рецепторных волокон и 3) еще глубже лежащего слоя полиморфных клеток. В такой коре рецепторные импульсы, приносимые рецепторными аксонами, будут накопляться в зерновидных клетках. Позднее эти клетки под влиянием стимуляции могут освобождать накопившуюся нервную энергию и давать таким образом отсроченный эффекторный ответ вместо немедленного. В мозгах такого рода (например, у кенгуру) приносимые импульсы, а по-видимому, и зерновидные клетки, связаны со всеми частями коры того же полушария при помощи ассоциационных нейронов полиморфного слоя. У более высокостоящих млекопитающих к перечисленным слоям присоединяется еще более расположенный кнаружи слой пирамидальных клеток и корковые нейронные пути таким образом значительно увеличиваются. Элементы контроля над действиями и память предыдущих стимулов и действий начинают заметно вступать в поведение животного. В конце концов, с присоединением ассоциационных областей и огромным размножением в этих областях нервных элементов как инфрагранулярного, так и супрагранулярного типов мы достигаем мозга человека с его проявлениями - памяти, разума, речи. Здесь мы имеем дело с теми же структурными элементами, что и у других млекопитающих, но с сильно развившейся системой промежуточных нейронов.
Функции инфрагранулярной мозговой коры, состоящей из внутренней пластины волокон и внутренней клеточной пластины (полиморфные клетки), как показали исследования Bolton на мозгах человека и исследования Watson на мозгах млекопитающих, сводятся к обслуживанию низшей волевой и инстинктивной деятельностей животного. Главной функцией инфрагранулярной коры человека, говорит проф. Berry, является управление теми действиями нашего тела, которые образуют базу многочисленных сложных рефлекс сов, необходимых для сохранения индивидуума и вида, как, например, добывание пищи, отыскивание соответствующего убежища, отыскивание и обладание субъектом другого пола и т. п. Ширина (глубина) инфрагранулярного слоя коры у взрослых нормальных людей более или менее постоянна. По Bolton, при тяжелых формах аменции и деменции глубина этого слоя заметно уменьшается. Словом "аменция" Bolton обозначает умственное состояние больных, страдающих от недостаточного развития корковых нейронов (субэволюция мозга), а словом "деменция" - умственное состояние больных, страдающих от перерождения корковых нейронов.
При тяжелых формах аменции и деменции больные не в состоянии сами надлежащим образом обслуживать свои естественные нужды.
Гранулярный слой, который всегда хорошо развит на воспринимающих участках коры, в первую очередь обслуживает восприятие рецепторных импульсов, независимо от того, проходят ли эти рецепторные импульсы прямо от низших рецепторных нейронов или не прямо - от других областей коры. Как известно, первоначальным связующим типом нервной ткани являются ассоциационные и коммиссуральные клетки, наблюдаемые в спинном мозгу почти всех позвоночных животных, и лишь позднее в надсегментальных прибавлениях мозга появляются зерновидные клетки. Ясно, говорит проф. Berry, что они служат для восприятия и накопления рецепторных импульсов и для ассоциирования впечатлений данного момента с ранее накопленными впечатлениями, а следовательно, и в коре человеческого мозга зерновидные нейроны должны играть роль в процессе запоминания.
Слой надгранулярных пирамид является новейшим добавлением к неопалиальной мозговой коре млекопитающих. По Watson, у насекомоядных надгранулярный слой пирамидальных клеток находится в зачаточном (рудиментарном) состоянии, но становится все более и более выраженным по мере восхождения по лестнице млекопитающих и лучше всего выражен у человека. Слой надгранулярных пирамид является единственным, глубина которого заметно вариирует на нормальных мозгах. Так как этот слой развился последним, то он раньше других слоев поддается регрессивным изменениям.
По Berry, супрагранулярный слой в общем можно рассматривать как удвоение инфрагранулярного слоя, однако и форма клеток, и функция супрагранулярного слоя иная, чем инфрагранулярного. Многочисленные пирамидальные клетки супрагранулярного слоя перемешаны с клетками 2-го типа Golgi, с горизонтальными клетками Cajal и с клетками Martinotti. Рецепторные аксоны, приходящие главным образом от зрительного бугра (а также и от других частей мозга) и образующие наружную линию Baillarger, обслуживают по преимуществу супрагранулярную кору.
Хотя все чисто двигательные клетки мозговой коры имеют пирамидальную форму, все же, говорит Berry, нельзя рассматривать все пирамидальные клетки коры как двигательные. Исходя из того положения, что чем длиннее аксон, тем обширнее клетка, Berry высказывает предположение, что малые пирамидальные клетки образуют короткие ассоциационные связи с прилежащими извилинами; пирамидальные клетки среднего размера могут давать ассоциационные связи с более отдаленными извилинами, и, наконец, большие пирамидальные клетки, за исключением клеток Betz, могут быть рассматриваемы как клеточные тела по крайней мере некоторых коммиссуральных волокон, идущих через мозолистое тело к тем или другим участкам коры полушарий противоположной стороны. Супрагранулярный слой коры обслуживает "психические", ассоциативные функции нашего мозга в противоположность органическим, инстинктивным функциям инфрагранулярного слоя, на которые супрагранулярный слой может действовать тормозящим образом. Функции супрагранулярного слоя связаны с личным опытом животного и подлежат значительным изменениям на протяжении жизни индивидуума.
Неопалиальная кора млекопитающих не является однородной по своей структуре на всем своем протяжении, но может быть подразделена на ряд участков, которые отличаются друг от друга своим микроскопическим строением. Одни из этих корковых участков являются чувствующими проекционными областями коры, куда приходят чувствующие импульсы от нижележащих уровней мозга. Так 1 -3-я области Brodmann связаны с общей чувствительностью, 22-я область - со слуховой чувствительностью, 17-я область со - зрительной чувствительностью. Зрительная область сравнительно обширна и хорошо дифференцирована у всех приматов, по-видимому, в связи с преобладанием у. них чувства зрения. На вентральной стороне лобного полюса, как это хорошо видно, например, на рисунке мозга лемура microcebus, имеется небольшая область коры (8-е поле), которую можно назвать префронтальной областью и которая получает волокна от дорзо-медиального ядра зрительного бугра. Это ядро связано с висцеральными центрами hypothalamus. У человека префронтальная кора занимает 8-12-е и 44-47-е поля Brodmann, причем 8-е поле является переходным. По-видимому, префронтальная кора, говорит Le Gros Clark, развивается как механизм, при помощи которого висцеральные реакции, которые являются единственным элементом эмоционального поведения и инстинктивных импульсов, могут быть контролируемы высшими функциональными уровнями мозга. Интересно отметить, что префронтальная кора, а вместе с ней и дорзо-медиальное ядро зрительного бугра подвергаются прогрессивному расширению в ряду приматов, достигая своего наивысшего выражения у человека. У низших млекопитающих префронтальная область выражена слабо. По наблюдениям Le Gros Clark, эта область развивается как распространение кпереди коры островка (поля 13-16-е) и не может быть рассматриваема как дифференцированный участок собственно лобной коры. Поле 4-е представляет двигательную проекционную кору, которая дает начало двигательным пирамидальным трактам, при помощи которых непосредственно вызываются и контролируются произвольные движения. Ассоциационными областями коры называют те области, которые не являются непосредственно воспринимающими импульсы, идущие от более низких мозговых уровней. Ассоциационные области связаны с корреляцией функций проекционных областей. Они представляют собой анатомический субстрат таких мозговых процессов, как ассоциация идей, память и т. п. Эти ассоциационные области лучше выражены на мозгах более высокостоящих приматов; по мере своего распространения они все более и более отдаляют друг от друга проекционные области. У лемура microcebus ассоциационные поля по сравнению с ассоциационными полями низших млекопитающих одинакового с microcebus веса довольно обширны, особенно теменное ассоциационное поле, отделяющее поле общей чувствительности от зрительного поля.
Структура мозговой коры. Мозговая кора состоит из большого количества клеточных элементов и большого количества нервных волокон как безмиэлиновых, так и покрытых миэлином. Нервные клетки принадлежат к различным морфологическим типам и собраны в более или менее определенные слои.
Большинство нервных волокон коры имеет радиальное направление, однако некоторые зоны характеризуются многочисленными волокнами, которые идут параллельно поверхности.
Большинство нейронов коры соответственно их форме делят на три группы: 1) пирамидальные клетки, 2) полиморфные клетки и 3) зерновидные клетки. Помимо указанных трех типов нервных клеток, которые наблюдаются почти во всех отделах коры, на некоторых участках коры встречаются также нейроны и других типов, например, клетки Cajal, клетки Martinotti и т. д.
Нижеприводимая более или менее детальная характеристика клеток и волокон коры взята мною у Kuntz (рис. 250).
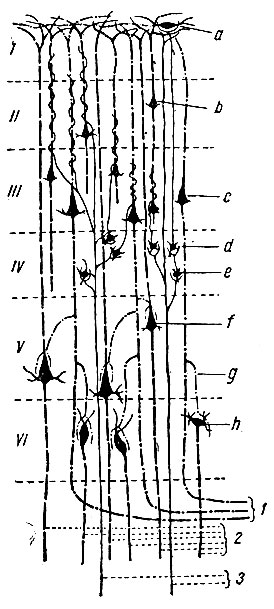
Рис. 250. Схема некоторых главных внутрикорковых синаптических связей. a - горизонтальная клетка; b - малая пирамидальная клетка; c - пирамидальная клетка среднего объема; d - клетка Martinotti; e - зерновидная клетка; f - большая пирамидальная клетка; g - коллатераль; h - полиморфная клетка. 1 - ассоциационные волокна; 2 - выносящие волокна; 3 - приносящие волокна (по Kuntz)
Пирамидальные клетки образуют большинство корковых нейронов и встречаются почти во всех отделах коры. Они сильно вариируют по своему объему и обычно классифицируются как малые, средние, большие и гигантские пирамидальные клетки. Верхушка пирамидальной клетки обращена к поверхности коры; от верхушки отходит верхушечный дендрит, который направляется к поверхности и оканчивается в виде разветвлений в поверхностном слое коры. Его длина вариирует в зависимости от расстояния клеточного тела от поверхности. Обычно он дает небольшое число ветвей. Различное число небольших дендритов отходит также от основания и от боковых сторон пирамидальной клетки. Аксон отходит от основания клетки и направляется в подкорковое белое вещество. Аксон дает коллатерали, которые разветвляются в прилежащей коре.
Полиморфные клетки также имеются почти во всех областях коры, но встречаются лишь в самом глубоком слое. Они вариируют по форме и по величине в различных областях коры, но лишь в сравнительно ограниченных пределах. Длинная ось их клеточного тела по преимуществу направлена перпендикулярно к поверхности коры. Дендрит возникает из наружного полюса. Нейрит возникает или от внутреннего полюса, или со стороны клеточно